 기념비적인 논문을 읽읍시다

이번 주의 논문
mRNA 백신을 상자 하나에서 만들 수 있는가 — DNA 주형을 넣으면 여덟 시간 뒤 지질나노입자가 나오는 통합 플랫폼
브라우저 안의 VS Code · 원문과 한국어판 · 논문에게 묻는 AI · 파이썬 터미널
 1
🐧 운영체제 첫걸음
학생마다 자기만의 가상 Ubuntu 24.04 서버를 배정받아, 그 안에 설치된 쇼핑몰을 20강에 걸쳐 직접 운영합니다. 배포하고, 죽이고, 502를 만들고, 로그로 원인을 찾습니다.
- 1부 커널과 셸 · 터미널 · 파일 시스템 · nano
- 2부 권한 · 프로세스 · 가상 메모리 · 파이프 · 셸 스크립트
- 3부 apt · SSH · 배포 · systemd · nginx · 장애 대응 · 방화벽
 2
🖥️ 컴퓨터 구조론 첫걸음
비트 하나에서 시작해 게이트 · CPU · 캐시 · 가상 메모리를 지나, 초당 300건의 주문을 받는 쇼핑몰 서버의 병목을 직접 진단하는 데까지 갑니다. 미니 CPU 한 대를 직접 몰아 봅니다.
- 1부 비트 · 2의 보수 · 논리 게이트 · CPU 속으로 · 기계어
- 2부 메모리 계층 · 캐시 · 페이지·TLB · 파이프라인 · IOPS
- 3부 성능 지표 3분 진단 · OOM · 워커 튜닝 · 블랙프라이데이
 3
🌐 컴퓨터 네트워크 첫걸음
가상 네트워크 시뮬레이터 위에서 서버 한 대를 직접 설정합니다. 고정 IP를 잡고, 방화벽을 열고, 인증서를 걸고, 502의 원인을 계층별로 잘라 찾습니다.
- 1부 패킷 · IP·CIDR · 라우팅·ARP · TCP/UDP · DNS · HTTP
- 2부 netplan · ufw · NGINX · HTTPS · 리버스 프록시 · 이중화
- 3부 4가지 황금 신호 · 장애 진단 · rate limit · 성능 튜닝
 4
🏷️ 도메인 관리 첫걸음
주소창에 이름을 치면 왜 내 서버가 뜰까요. 그 사이의 다섯 관문을 하나씩 엽니다 — DNS · 프록시 · 자물쇠 · 터널 · nginx. 마지막에는 공인 IP 도 열린 포트도 없는 서버에 새 서비스 하나를 직접 내놓습니다.
- 1부 이름의 구조 · 재귀 해석 · 등록기관과 만료 · 레코드 다섯 · TTL
- 2부 클라우드플레어 · A 레코드 · 프록시 · TLS 악수 · SSL 모드 · 오리진 인증서
- 3부 NAT 과 CGNAT · cloudflared 터널 · API 토큰 · 리버스 프록시 · server_name · 장애 대응
 5
🧱 자료구조 첫걸음
변수 하나에서 시작해 스택 · 큐 · 트리 · 그래프까지, 데이터를 담는 그릇을 차례로 만들어 봅니다. 모든 파이썬 코드가 Pyodide로 브라우저 안에서 바로 돕니다.
- 1부 리스트 · 딕셔너리 · 스택 · 큐·덱 · 연결 리스트 · 트리·BST
- 2부 힙 · 해시 테이블 · 그래프 · BFS/DFS · 정렬 5종 · 미로 탈출
- 3부 시간 복잡도 Big-O · 자료구조 고르는 법
 6
🧭 알고리즘 첫걸음
모든 예제가 실제 쇼핑몰 운영 상황에서 출발합니다. 베스트 10을 뽑고, 쿠폰을 최적화하고, 트래픽을 제어하고, p99 지연을 로그에서 계산합니다.
- 1부 비용과 Big-O · 선형 탐색 · 이진 탐색(=DB 인덱스)
- 2부 정렬 5종 · 해시로 N+1 해결 · Top-N · 탐욕 · 동적 계획법
- 3부 그래프·다익스트라 · LRU 캐시 · 토큰 버킷 · 이상 탐지 · 로그 분석
 7
🗄️ 데이터베이스 첫걸음
변수에서 시작해 SQLite3 · Flask · Jinja2 · Bootstrap으로 쇼핑몰을 직접 만들고 배포까지 갑니다. SQL은 사용자마다 배정되는 개인 샌드박스 DB에서 실행됩니다.
- 1부 레코드 · CRUD · 테이블 · 인덱스 · JOIN·정규화 · 트랜잭션
- 2부 SQLite3 → Flask → Jinja2 → Bootstrap · 전자상거래 졸업작품
- 3부 도메인·DNS · HTTPS 인증서 · NGINX · 터널로 NAT 통과 · 운영
 8
🔐 정보보호·네트웍보안 첫걸음
읽기만 하는 대신 직접 공격해 보고, 그 공격이 통하는 것을 눈으로 본 뒤 막습니다. 학생마다 가상 서버 한 대가 배정되고, 공격 명령도 실제 트래픽 없이 안전하게 돕니다.
- 1부 위협 모델 · 정찰 · 방화벽 · 해시 · 암호 · 인증서
- 2부 무차별 대입 · 도청 · 권한 · SSH 굳히기 · fail2ban · DDoS
- 3부 SQL 인젝션 · XSS · 업로드 · 세션 · 로그 · 사고 대응 · 점검표
 9
🔢 이산수학 첫걸음
컴퓨터가 쓰는 수학. 참·거짓 두 글자에서 시작해 진리표 · 집합 · 관계 · 함수 · 귀납법 · 순열과 조합 · 확률 · 정수론 · 그래프까지, 손으로 세고 파이썬으로 확인하며 갑니다. RSA 암호와 한붓그리기도 직접 돌려 봅니다.
- 1부 명제 · 진리표 · 조건명제 · 부울대수 · 한정기호 · 증명법
- 2부 집합·연산 · 관계 · 함수 · 귀납법 · 점화식
- 3부 셈의 법칙 · 순열·조합 · 비둘기집 · 포함배제 · 확률 · 정수론 · 그래프
 10
🐍 파이썬 첫걸음
생물학을 하는 사람을 위한 파이썬. 변수와 리스트에서 시작해 FASTA 를 읽고, pandas 로 표를 거르고, 볼케이노와 히트맵을 그린 뒤, PNAS 2025 DDX54 논문의 11,070 → 3,055 표본 선별을 직접 재현합니다.
- 1부 값과 이름표 · 문자열과 서열 · 리스트 · 딕셔너리 · 조건 · 함수
- 2부 FASTA · CSV·TSV · numpy · pandas · merge·groupby · matplotlib
- 3부 log2 · t-검정 · 볼케이노 · 히트맵 · 오류 읽기 · 논문 재현
 11
⚗️ 생물정보학을 위한 화학 첫걸음
/bio 와 /gene 은 DDX54 를 이름으로 씁니다. 이 20강은 그 이름 뒤를 열어요 — DEAD 는 아미노산 넉 자이고, p- 는 전하 −2 를 띤 인산기이며, CD38 은 NAD⁺ 를 쪼개는 효소입니다.
- 1부 원자와 결합 · 물과 소수성 효과 · pH 와 pKa · 완충액 · 생체분자 넷
- 2부 뉴클레오타이드 · 2′-OH 와 DV200 · 염기쌍과 Tm · 아미노산 · 접힘 · 효소
- 3부 ATP 와 DEAD-box · 인산화 · NAD⁺ 와 CD38 · 아데노신 · 항체 · 돌연변이의 화학
 12
🧬 생물정보학 첫걸음
논문을 믿지 말고 직접 다시 계산해 봅시다. 2025년 PNAS 논문이 지목한 폐암 면역회피의 총사령관 DDX54 — 그 핵심 실험을 NCBI GEO 의 진짜 원자료로 처음부터 다시 돌립니다. 저자의 답을 보지 않고 정규화 · 통계 · 경로 분석을 여러분 손으로.
- 1부 RNA-seq 원자료 · GEO · pandas · numpy 축과 브로드캐스팅
- 2부 CPM 정규화 · log2 · 녹다운 검증 · 저발현 필터
- 3부 log2FC · limma 경험적 베이즈 · moderated t · 화산도 · GSEA · 재현 판정
 13
📐 선형대수학 첫걸음
컴퓨터 그래픽스 · 기계학습 · 검색이 모두 딛고 선 수학. 화살표 하나에서 시작해 행렬 · 일차변환 · 행렬식 · 가우스 소거법 · 기저와 차원 · 정사영 · 최소제곱법 · 고윳값 · 특잇값 분해까지, 격자를 직접 일그러뜨리고 파이썬으로 검산하며 갑니다.
- 1부 벡터 · 선형결합 · 내적 · 행렬 · 행렬×벡터 · 일차변환 · 행렬 곱
- 2부 행렬식 · 역행렬 · 연립방정식 · 가우스 소거 · 랭크 · 부분공간 · 기저 · 영공간
- 3부 정사영 · 최소제곱법 · 고윳값 · 대각화 · 특잇값 분해
 14
🎲 확률과 통계 첫걸음
통계가 답하는 물음은 하나뿐입니다 — 이만한 차이가 그냥 우연일 수 있는가.
이 스무 강은 이 사이트의 열다섯 과목이 저마다 바닥부터 다시 설명하던 것을 한곳에 세웁니다. 귀무분포와 p 값, 검정력과 신뢰구간, 순열검정과 붓스트랩, 다중검정과 FDR, 그리고 마지막에는 계산이 맞는데 문장이 틀리는 경우들. 예제는 지어내지 않고 이 사이트가 실제로 계산해 둔 결과를 씁니다 — TCGA-LUAD 566명, miRNA 347개, 슬라이드 5,202장.
- 1부 우연이란 무엇인가 · 확률 · 분포와 치우침 · 표본 · 중심극한정리
- 2부 표준오차와 신뢰구간 · 귀무분포 · p 값 · 검정력과 승자의 저주
- 3부 검정 고르기 · 순열검정 · 붓스트랩 · 다중검정 · FDR
- 4부 생존분석과 중도절단 · 회귀와 조정 · 교란과 심슨의 역설 · 실습 종합
 15
🤖 기계학습 첫걸음
/stat 은 이 차이가 우연인가를 묻습니다. 이 20강은 다른 것을 묻습니다 — 새 자료에서도 맞히는가.
성공의 기준이 다르고, 그래서 속는 방식도 다릅니다. y 가 X 와 아무 관계가 없는 자료로도 AUC 0.9 를 만들 수 있어요 — 특징을 미리 고르기만 하면요. 과적합·정보 누출·불균형·문턱·인과 오독, 다섯 함정을 손으로 돌려 봅니다. scikit-learn 없이 numpy 로 직접 짭니다.
- 1부 추론과 예측 · 네 가지 일 · 특징과 눈금 · 나누기 · 과적합
- 2부 교차검증 · 정확도가 거짓말할 때 · ROC 와 AUC · 문턱 · 보정
- 3부 선형 모형과 규제 · 나무와 숲 · 이웃과 경계 · PCA · 군집
- 4부 정보 누출 · 불균형 · 중요도의 함정 · 실습 종합 · 정리
 16
🧠 딥러닝 첫걸음
/ml 11강이 딥러닝을 꺼내기 전에 선형 모형부터 로 끝났습니다. 이 20강은 그 다음입니다.
네 점을 직선으로 가를 수 없다는 데서 시작해 역전파를 손으로 짜고, 어텐션을 여섯 줄로 만들고, AlphaFold 가 CASP14 에서 92.4 를 어떻게 냈는지까지 갑니다. PyTorch 를 쓰지 않습니다 — 안이 어떻게 생겼는지는 한 번 짜 봐야 아니까요. 마지막 강은 언제 딥러닝을 쓰지 말아야 하나 입니다.
- 1부 직선이 못 하는 것 · 뉴런 하나 · 층 쌓기 · 역전파 · 학습률
- 2부 기울기 소실과 초기화 · 미니배치 · 조기종료와 드롭아웃 · 정규화 · 손잡이 고르기
- 3부 합성곱 · 서열의 한계 · 어텐션 · 트랜스포머 · 사전학습과 전이
- 4부 단백질과 AlphaFold · 슬라이드와 세포 · 지름길 학습 · 실습 종합 · 언제 쓰지 않나
 17
🐍 바이퍼 첫걸음
암을 실제로 굴리는 것은 DNA가 아니라 단백질인데, 단백질 활성은 재기가 어렵습니다. VIPER 는 부하 유전자들의 웅성거림을 읽어 그 단백질이 무슨 짓을 하고 있는지 역추적합니다. ARACNe 가 그린 인맥 지도 위에서요. 논문의 수식을 한 항씩 손으로 짜 봅니다.
- 1부 단백질 활성 · 레귤론 · ARACNe · MoR · 신뢰도 가중치
- 2부 시그니처 · 순위 변환 · 농축 · 정규분위수 · aREA · NES · 귀무분포
- 3부 msVIPER · metaVIPER · 단일세포 · 그림자 · 마스터 레귤레이터 · 체크포인트 · 약물 표적
 18
🕵️ 디지트 첫걸음
VIPER 가 현장의 실세를 잡았다면, DIGGIT 은 그 실세를 뒤에서 조종한 유전체 변이를 추적합니다. 상관관계에서 멈추던 자리에서 인과의 사슬을 잇는 법을, 상호정보량부터 순열검정까지 손으로 짜 보며 배웁니다.
- 1부 드라이버와 패신저 · 3단 공조 · GWAS 의 한계 · 변이의 종류 · F-CNV
- 2부 상호정보량 · 레귤론 · VIPER 활성 · 시그니처 · 마스터 레귤레이터
- 3부 aQTL · 검정력 · 순열검정 · FDR · MINDy · 조건부 분석 · 증거 통합 · KLHL9
 19
🕸️ 유전자탐색 첫걸음
ARACNE-VIPER-DIGGIT를 체험합니다. 폐암세포가 태아로 변장해 면역세포를 따돌린다는 것을 밝혀낸 KAIST 조광현 교수 연구팀의 3단계 네트워크 분석을, TCGA 공개 원자료로 여러분이 직접 다시 돌려 마스터 조절자 DDX54 를 찾아냅니다.
- 1부 면역 사막의 역설 · TCGA 표본 선별 · TMB · 면역사막 시그니처
- 2부 상호정보량 · ARACNE 네트워크 · DPI · 레귤론 · VIPER 활성 추론 · aREA
- 3부 DIGGIT · F-CNV · MINDy · Regulator score · 녹다운 검증 · in vivo · 재현 판정
 20
🕸️ 아라크네 첫걸음
바이퍼가 쓰는 레귤론은 어디서 오는가. ARACNe 는 발현 자료만 보고 유전자들의 그물을 통째로 되찾는 알고리즘입니다. 남의 프로그램을 받아 쓰지 않고 엔트로피 한 줄에서 시작해 직접 짜서, 정답을 아는 모의 코호트로 채점까지 합니다.
- 1부 전사인자와 표적 · 상관계수의 한계 · 엔트로피 · 상호정보량
- 2부 칸 나누기와 편향 · 순위 변환 · MI 행렬 · 귀무분포 문턱
- 3부 데이터 처리 부등식 · 관용값 · 부트스트랩 합의 · 레귤론 · VIPER · 함정과 검증
 21
🧫 생물정보학 데이터셋 첫걸음
논문의 그림은 맨 끝입니다. 맨 앞에는 열 수도 없는 .h5 파일 네 개가 있을 뿐이죠. GEO에 올라온 GSE268555 원자료를 h5py 로 직접 열어, 구조를 파악하고 · 품질을 재고 · 그림으로 바꾸고 · 어디까지 말할 수 있는지 판단합니다. 세포 40,100개, 유전자 32,285개가 손에 들어옵니다.
- 1부 GEO 등록번호 · HDF5 구조 · shape와 dtype · 희소행렬 · 이름표의 함정
- 2부 품질관리 · 무릎 그래프 · 정규화 · 고변동 유전자 · PCA · 군집 · t-SNE · 주석
- 3부 슬라이딩 갤러리 · 조건 비교 · 차등발현 · 함정 여덟 개 · 재현성 · 결산
 22
🗺️ 공간전사체 데이터셋 첫걸음
단일세포 RNA-seq 은 조직을 갈아서 읽습니다 — 그 순간 어디에 있었는지가 사라지죠. Xenium 공간전사체는 조직을 그대로 둔 채 읽어, 세포마다 x·y 좌표가 남고 mRNA 분자 하나하나에도 좌표가 있습니다. 종양 한 장에 세포 19만 개, 분자 9,548만 개. 그 원자료(GSE285341)를 h5py 로 직접 엽니다.
- 1부 실험 기록 · 세포 표 · 조직 지도 · 분자 좌표 · 품질 점수 · 음성 대조군 · 표적 패널
- 2부 세포 분할 · 분자 배정 · 행렬 만들기 · 공간 QC · 군집 · 지도 색칠 · 슬라이딩 갤러리
- 3부 이웃 농축 · 침윤 재기 · 조건 비교와 민감도 검사 · 공간 자료의 함정 · 결산
 23
✂️ miRNA-mRNA 첫걸음
세포 안에는 22 글자짜리 RNA 수천 종이 떠다니며 짝이 맞는 mRNA를 조용히 눌러 놓습니다. 이 층은 mRNA만 읽어서는 보이지 않습니다. 같은 세포를 두 번 읽은 원자료 두 장 (miRNA 1,976종 · 유전자 24,419개)을 겹쳐 놓고, 둘을 잇는 씨앗 규칙을 직접 짜 넣어 어느 miRNA가 늘었을 때 정말 그 표적이 줄었는지를 판정합니다.
- 1부 표 두 장 열기 · 깊이 정규화 · 치우친 발현 · 차등발현 · miRNA 공장 · 다중검정
- 2부 씨앗 2~8번 · 계열 · 3'UTR 200만 염기에서 자리 찾기 · TargetScan 대조 · PCT
- 3부 누적분포 · 용량반응 · 계열 82개 지도 · 효과 크기와 신뢰구간 · 검정력 · 재현 판정
 24
🧾 bulk RNA-seq 첫걸음
논문에 실리는 것은 깔끔한 카운트 표지만, 시퀀서가 내놓는 것은 76글자짜리 조각 2,500만 개입니다. 이 강의는 그 사이를 직접 잇습니다 — SRA에서 받은 진짜 FASTQ를 열어 품질을 재고, 섞여 들어온 리보솜 RNA를 잡아내고, k-mer 색인을 손으로 지어 read를 유전자에 붙인 뒤, 만든 표를 논문이 GEO에 올린 표와 맞춰 봅니다.
- 1부 FASTQ 네 줄 · read 이름과 유리판 좌표 · Phred 점수 · 위치별 품질 곡선
- 2부 중복 37% · 리보솜 RNA 20% · 어댑터와 polyA · 트리밍은 정말 필요한가
- 3부 k-mer 색인 · 역상보 · 44,000 read 붙이기 · 유전자 이름이 안 맞는 문제
- 4부 카운트 표 만들기 · 깊이와 정확도 · 길이 편향 · 천장 계산 · 재현 판정
 25
⚔️ T세포 첫걸음
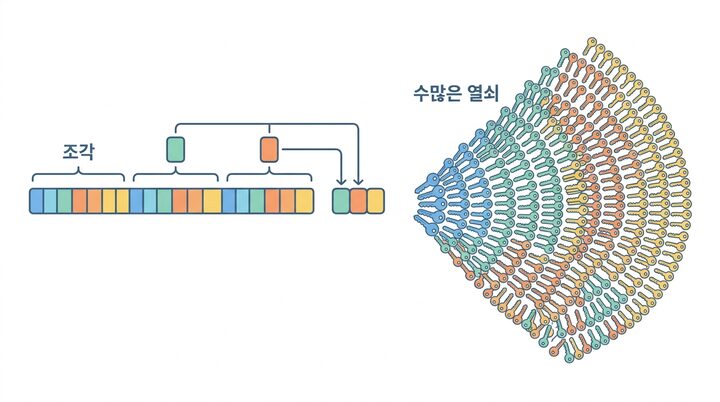
T세포 하나는 딱 하나만 알아봅니다. 그런데 몸에는 아직 만난 적 없는 병원체까지 알아볼 수용체가 준비되어 있어야 해요. 그 설계 문제를 만들기 → 고르기 → 읽기 세 단계로 풀어 갑니다.
개념만 말하지 않습니다 — 10x Genomics 가 공개한 실제 사람 레퍼토리 네 표본, 세포 11,791개를 직접 열어 계산합니다. 그리고 자료만 보고 두 표본이 같은 사람인지 알아냅니다.
- 1부 V(D)J 재조합 · IMGT 배선 유전자 · V 사용 편향 · CDR3 · 이음매 다양성
- 2부 흉선의 두 문턱 · MHC 제한 · 생존자 편향
- 3부 Shannon · 균등도 · Gini · D50 · 희박화 · 클론 크기 분포 · 공개 클론 · 항원 특이성
- 4부 CD4 아형 · 조절 T세포 · 세포독성 · 기억 · 소진 · 논문 Fig 8 채점
 26
🎫 항원제시 첫걸음
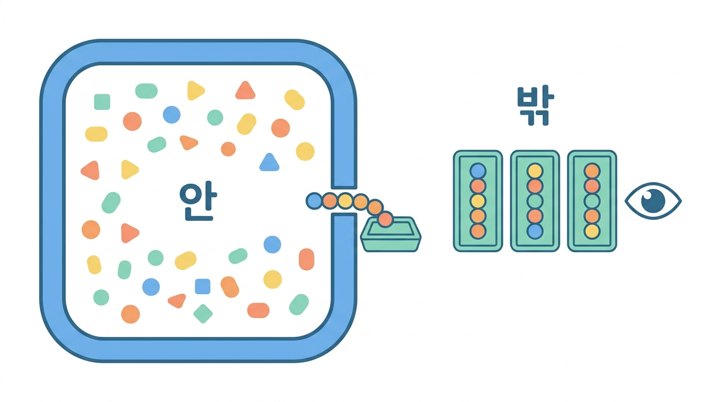
면역계가 감염된 세포를 알아보려면 안을 들여다봐야 합니다. 그런데 세포막은 불투명해요. 해답은 게시판이었습니다 — 세포는 자기 단백질을 잘라 조각을 표면에 걸어 둡니다.
개념만 말하지 않습니다 — IMGT/HLA 대립유전자 3만 개와 IEDB 질량분석 펩타이드로 다형성 지도를 직접 그리고, 결합 모티프를 찾고, 예측기를 손으로 만들어 다른 실험으로 채점합니다.
- 1부 MHC-I 의 홈 · 프로테아좀 · TAP 과 적재 복합체 · MHC-II · 교차제시
- 2부 HLA 다형성 지도 · 결합 모티프 · 앵커 · PSSM 예측기 · ROC 와 AUC
- 3부 신생항원 · KRAS 변이 9mer 실습 · 결합 ≠ 제시 ≠ 면역원성 · 면역펩티돔
- 4부 B2M 과 HLA 결손 · TCGA 1만 표본 · 인구집단 빈도 · HLA-질병 연관 · 논문의 49개 유전자 필터
 27
🚦 면역관문과 면역치료 첫걸음
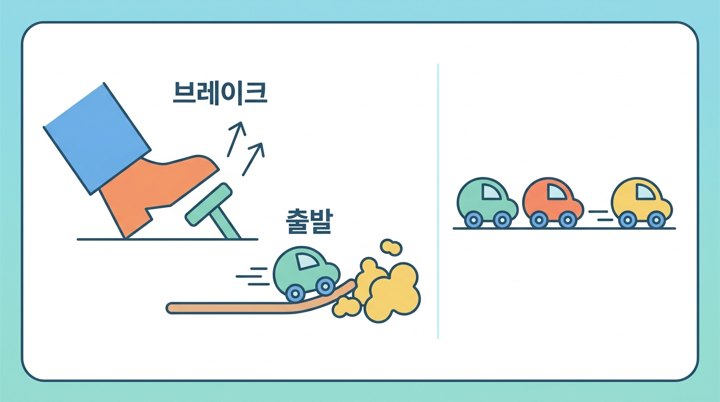
백 년 동안 면역을 북돋우려 했습니다. 전부 실패했어요. 답은 반대쪽에 있었습니다 — 브레이크에서 발을 떼는 것. 그 발상이 노벨상을 받았지만, 대부분의 암종에서 반응하는 환자는 소수입니다.
이 20강은 왜 그런지를 따라갑니다. 개념만 말하지 않아요 — TCGA 종양 10,071개로 관문 상관 네트워크를 그리고, 예측 지표 넷을 H&E 로 잰 림프구 침윤으로 채점합니다.
- 1부 CTLA-4 와 PD-1 · PD-L1 을 켜는 두 길 · 범암 발현 10,071 표본
- 2부 항체가 막는 자리 · IgG 아형 · LAG-3 와 TIGIT · 상관 네트워크
- 3부 PD-L1 염색의 표준화 문제 · TMB 와 GEP · 다른 자로 채점하기
- 4부 1차·적응·획득 저항 · 병용 · 시너지와 p 값의 상한 · irAE · CAR-T
 28
🦾 세포치료 첫걸음
/tcell 이 수용체를, /antigen 이 항원 제시를, /checkpoint 가 브레이크 풀기를 다뤘습니다. 이 20강은 그 다음 칸입니다 — 세포 자체를 고쳐서 약으로 만드는 일. CAR 을 네 조각으로 뜯어 보고, 만드는 데 왜 몇 주가 걸리는지 세어 보고, ELIANA 75명의 숫자를 구간과 3의 법칙까지 걸어 읽습니다. 그리고 /trial·/reg 의 절차가 여기서 어디서 휘는지까지.
- 1부 왜 세포인가 · CAR 의 네 조각 · 만드는 과정 · 자리를 비워 준다 · 살아남아야 듣는다
- 2부 ELIANA 75명 · 사이토카인 방출 증후군 · 신경독성 · 재발의 두 갈래 · 고형암의 세 관문
- 3부 TCR-T · TIL 치료 · 동종 · CAR-NK 와 CAR-대식세포 · 논리 회로와 안전 스위치
- 4부 살아 있는 약의 품질관리 · 규제 · 값과 접근성 · 실습 종합 · 정리
 29
🌳 NK세포와 수지상세포 첫걸음
면역 이야기는 대개 T세포에서 시작합니다. 그런데 T세포가 종양에 닿기까지 며칠이 걸리고, 그동안 승부의 상당 부분이 이미 정해집니다.
NK세포의 규칙은 T세포와 정반대예요 — 이상한 것이 보여서가 아니라 정상 신호가 없어서 죽입니다. 수지상세포는 항원을 주워 림프절로 걸어가 T세포를 깨웁니다.
마우스 면역세포 11,128개로 이름표를 검증하고, 평균이 지운 드문 세포를 찾아내고, 공간 자료에서 NK 옆에 수지상세포가 있는지 셉니다.
- 1부 missing-self · 활성화와 억제의 균형 · NKG2D · KIR 과 HLA · NK 교육
- 2부 ADCC · TCGA 세포용해 활성 · 기억 유사 NK 와 CAR-NK
- 3부 DC 아형 넷 · 패턴 인식과 STING · 성숙과 이동 · 교차제시 · cDC1 병목
- 4부 DC 백신이 어려운 이유 · NK–DC 되먹임 고리 · Xenium 공간 이웃 분석
 30
🏹 B세포와 항체 첫걸음
T세포 수용체는 만들어지면 그대로입니다. B세포 수용체는 몸 안에서 좋아집니다.
림프절의 배중심에서 며칠 만에 변이하고 · 시험받고 · 살아남기를 수십 번 반복해요. 다윈이 말한 진화가 일주일 만에 여러 바퀴 도는 자리입니다.
10x 공개 자료의 B세포 7,460개를 IMGT 배선 서열과 맞대어 돌연변이를 직접 셉니다. IgM 은 0.99%, IgG1 은 9.38% — 그 열 배 차이가 배중심이 남긴 자국입니다.
- 1부 Fab 와 Fc · κ:λ 비가 세 사람에서 같다 · 대립유전자 배제 95.1%
- 2부 V(D)J 조합 2,422만 · CDR3 · 배중심 · AID 하나가 하는 두 가지 일
- 3부 체세포 과돌연변이를 직접 센다 · 클래스 전환 · 짧아진 CDR3 · Fc 수용체
- 4부 공개 클론이 여섯 쌍 전부 0 · 이중체의 정체 · IgG1 과 IgG4 · 종양 안의 B세포
 31
🔋 종양 면역대사 첫걸음
면역학은 오랫동안 신호의 학문이었습니다. 그런데 신호가 켜져도 연료가 없으면 아무 일도 일어나지 않아요.
논문의 분자 기전이 바로 이 층입니다 — DDX54 → NF-κB → CD38 → NAD⁺ 고갈 → 아데노신 → T세포 억제. CD38 은 관문 분자가 아니라 효소예요.
이 20강은 그 사슬을 세포 37,585개로 따라갑니다. 그리고 소진한 T세포의 대사를 재다가 우리 '소진 점수' 가 사실 활성화 점수였다는 것까지 발견합니다.
- 1부 신호가 켜져도 연료가 없으면 · 쉬는 T세포와 싸우는 T세포의 연료 · 전사체는 능력이지 대사가 아니다
- 2부 포도당 경쟁 · 젖산은 노폐물이 아니다 · 저산소와 HIF-1α · 아르지닌과 트립토판 · IDO 3상이 실패한 이유
- 3부 NAD⁺ 의 균형 · CD38 — 이 자료에선 B세포가 1위다 · CD39-CD73 · A2A · 아데노신 축이 0.892 → 0.580 으로 내려간다
- 4부 소진의 대사적 얼굴 — 교과서 예측이 안 맞는다 · 지질 · M1/M2 대사의 진위 · 사람 자료에선 절반만 맞다
 32
🚚 면역세포 이동과 침윤 첫걸음
면역학 교과서는 대부분 알아보는 이야기입니다. 그런데 그 전에 풀어야 할 문제가 있어요 — 그 세포가 거기까지 가야 합니다.
논문은 이렇게 적었습니다 — 항-PD1 단독은 림프구를 불러오기는 하나 종양 중심으로 들여보내지는 못한다.
이 20강은 그 문법을 배우고, 그 주장을 좌표로 채점합니다. 세포 10만 개로 '침윤했다' 를 다섯 가지로 재면 다섯이 서로 다른 답을 냅니다.
- 1부 케모카인과 주화성 · 접착 4단계 · 셀렉틴·인테그린·ICAM · 케모카인 검문이라는 병목
- 2부 림프절이라는 건물 · HEV 전용문 · 각인 — 어디서 깨어났느냐가 목적지를 정한다 · 조직 상주
- 3부 종양 혈관은 새는데 세포는 못 나간다 · 기질과 CAF 의 물리적 장벽 · 케모카인을 지우는 네 가지 방법 · 되먹임 고리
- 4부 다섯 지표가 서로 다른 답을 낸다 · 거리 프로파일 · 둘레 종양비율 · TLS · 논문의 주장 셋 중 둘 지지 · 하나는 판정 불가
 33
🕳️ 암 면역회피 첫걸음
돌연변이가 많으면 면역이 알아볼 거리가 많습니다. 그런데 논문이 다루는 종양은 돌연변이가 많고, 항원제시도 멀쩡한데, T세포가 없습니다. 알아볼 수 있는데 아무도 오지 않아요.
이 20강은 그 방법의 목록입니다 — 보이지 않기 · 잡히지 않기 · 들어오지 못하게.
목록을 외우는 데서 그치지 않습니다. TCGA 폐선암 407 표본으로 하나씩 채점하고, 논문이 든 다섯 주장 중 무엇이 살아남는지 세 코호트에서 확인합니다.
- 1부 면역감시와 세 개의 E · 제거 · 평형 · 탈출 · 회피의 목록을 네 갈래로
- 2부 MHC-I 소실과 B2M · JAK1/2 획득저항 · 인식 회로 채점 — 그리고 침윤을 빼면 p = 0.94 로 사라지는 결론
- 3부 PD-L1 · CD47 · CD24 · CD38 · 유도형과 상시형을 IFN-γ 상관으로 가르기 · 논문의 두 표적이 정반대 무리에 있다
- 4부 Wnt 의 T세포 배제 · Myc 와 면역 · EMT (논문과 반대로 나온다) · 태아 위장술 · 상위조절자 · 세 코호트 검증
 34
🍖 대식세포와 골수계 첫걸음
면역항암제 이야기는 거의 언제나 T세포로 합니다. 그런데 종양을 흩어 세포를 세어 보면 T세포는 4.3% 뿐이에요. 그 자리를 채우는 것은 골수계 85.1% — 호중구와 대식세포입니다.
T세포는 편이 정해져 있습니다. 골수계는 아닙니다. 같은 대식세포가 암을 먹기도 하고, 암이 자라도록 혈관을 놓아 주기도 해요.
무엇이 그 편을 정하는가 — 논문 Fig. 7 을 표지자만으로 다시 만들고, 그 이름표가 이름값을 하는지 다른 유전자로 검증하는 20강입니다.
- 1부 종양 안 세포 인구조사 (골수계 85.1%) · 난황낭과 골수, 두 갈래 기원 · 단핵구 두 종류 · 폐포대식세포가 이 자료에 없는 이유
- 2부 식균작용과 옵소닌 · CD47-SIRPα '먹지 마' · 논문의 Cd47 주장을 우리 자료로는 검증할 수 없는 이유 · 에퍼로사이토시스
- 3부 M1/M2 는 한 축이 아니다 (r = −0.179, 둘 다 높은 세포 21.9%) · TAM · MDSC · 호중구와 NET, 그리고 전사체로 NET 을 못 보는 이유
- 4부 논문 Fig. 7 재현 (M1 유사 11.46→28.07%, 순환 27.34→13.75%) · 이름표 독립 검증 · 공간전사체로 같은 결론 확인
 35
📡 사이토카인과 신호전달 첫걸음
면역학 과목마다 같은 문장이 나옵니다 — IFN-γ 가 DC 를 성숙시킨다, IL-12 가 Th1 으로 민다, TGF-β 가 IgA 로 전환시킨다. 전부 같은 것을 가리키는데, 어느 과목도 그것이 무엇인지 말하지 않았어요.
이 20강이 그 자리입니다. 그리고 쉽지 않다는 것부터 배웁니다 — 종양 만 개에서 사이토카인 축은 하나도 갈리지 않습니다.
왜 그런지, 그리고 어떤 자료를 가져와야 답이 나오는지를 11강에서 13강까지 세 강에 걸쳐 따라갑니다.
- 1부 농도와 거리 · 누가 뿜나 (Il12b 를 만드는 세포 0.08%) · 다면성과 중복성
- 2부 공용 수용체 사슬 · JAK-STAT · 사슬이 정말 이어지나 · SOCS 되먹임
- 3부 축이 갈리지 않는다 · 침윤이라는 교란 · 벌크의 원리적 한계 · 단일세포로 다시 묻기
- 4부 사이토카인 폭풍 · IL-2 의 좁은 창 · 막는 약이 성공한 이유 · 사이토카인 지도
 36
🦠 면역학 첫걸음
논문이 어려운 것은 계산이 아니라 말 때문인 경우가 많습니다. 항원제시 · TMB · 면역사막 · 면역관문 · 소진 T세포 · M1 단핵구 · 조절 T세포 — DDX54 논문에 나오는 말을 하나씩 풀어, 초록과 그림 여덟 장을 혼자 읽을 수 있게 만듭니다.
개념 강의지만 숫자는 전부 진짜예요 — TCGA 환자 4,702명과, 이 사이트의 다른 강의가 원자료로 계산한 값만 씁니다.
- 1부 나와 남 · 선천면역과 적응면역 · 항원제시와 MHC · TCR 과 클론 증식 · 신생항원과 TMB
- 2부 종양미세환경 · 염증/배제/사막 세 가지 종양 · 면역관문 · CD47 과 CD38 · M1/M2 골수계
- 3부 미접촉→효과→기억 · T세포 소진과 후성유전학적 흉터 · 조절 T세포 · NK · B · 수지상세포
- 4부 면역관문억제제 · 반응 예측과 AUC · 태아 위장술 · 측정 도구의 맞바꿈 · 논문 읽는 순서
 37
🛡️ 단일세포 면역지도 첫걸음
면역치료를 받은 종양에서 림프구 비율이 2%에서 21%로 뛰었습니다. 숫자는 크고, 방향은 일관되고, 네 칸 중 한 칸에서만 벌어집니다. 이 결과를 어디까지 믿어도 될까요?
원자료(GSE268555)의 면역세포 37,585개로 그 물음에 답합니다 — 조성이 서로 묶여 있다는 것, 세포로 검정하면 p가 저절로 작아진다는 것, 그리고 표본이 넷이면 낼 수 있는 가장 작은 p가 0.25라는 것까지.
- 1부 세포유형 지도 읽기 · 이름은 누가 붙였나 · 지도에 낀 종양세포
- 2부 2×2 설계와 표본 하나 · 조성 비교 · 닫힘 문제 · 카이제곱의 함정
- 3부 유사복제와 순열의 벽 · 효과 크기 · 시그니처가 만드는 착시
- 4부 의사대량 · 리간드-수용체 · 주장 한 줄씩 대조 · 어떻게 설계했어야 했나
 38
🔬 종양침윤림프구 첫걸음
암 조직 슬라이드를 50 µm 조각으로 자르고, 조각마다 CNN 이 "여기 림프구가 있나?" 에 답합니다. 그렇게 만들어진 TIL 지도 5,202장이 공개되어 있어요.
이 강의는 그 지도의 픽셀을 직접 셉니다 — 분모를 무엇으로 할지, 문턱을 어디에 그을지부터 시작해, 같은 환자의 두 슬라이드가 22.8% 확률로 판정이 뒤집힌다는 것과, 암종을 섞으면 결론의 부호가 뒤집힌다는 것까지.
- 1부 지도 읽기 · 분모 고르기 · 문턱 긋기 · 조각 크기가 정하는 것
- 2부 5,202장의 분포 · 치우침 · 교란 점검 · 흩어짐과 깊이 · 이름 붙이기
- 3부 재현성 · 임상 변수 · 카플란-마이어 · 로그순위 검정
- 4부 cutoff hacking · 다중검정 · 심슨의 역설 · 배치 효과 · 순열검정
 39
🧬 암세포 디지털 트윈 첫걸음
유전자 하나를 스위치 하나로 보면, 세포 하나는 0과 1의 짧은 줄이 됩니다. 그 줄을 규칙대로 굴리면 세포의 운명이 나오고요.
유전자 여덟 개짜리 암세포 디지털 트윈을 손수 세우고, 가능한 유전자 조작을 256가지 세포에 전부 시험해 암 어트랙터를 없애는 표적을 찾습니다 — KAIST 조광현 교수팀이 DDX54 를 찾아낸 방식(MObyDiCK)의 뼈대를 가장 작은 크기로 다시 만들어 보는 강의입니다.
- 1부 스위치와 상태 벡터 · AND·OR·NOT · 동기 갱신 · 어트랙터 · 베이슨
- 2부 표현형 이름 붙이기 · 여덟 유전자 트윈 · 되먹임 고리 · 두 골짜기 · 비동기
- 3부 섭동 · DDX54 녹아웃 · 전수 스크리닝 · 가역화 효율 · 휴면 상태
- 4부 함정 셋 · 조합 폭발 · 규칙의 강건성 · 웻랩 검증 · 진짜 MObyDiCK
 40
🧪 실험실 화학 첫걸음
논문 부록의 방법 문단은 화학 처방전입니다. 「20 mM HEPES (pH 7.2), 150 mM NaCl, 0.5% Triton X-100, 10% glycerol, 0.1% SDS」 — 두 문장에 여섯 가지 결정이 들어 있어요. 이 20강은 그것을 읽는 법입니다.
- 1부 몰농도와 단위 · 완충액과 온도 · PBS 와 삼투 · CO₂ 완충계
- 2부 CMC 와 미셀 · 용해 완충액 · SDS-PAGE · HRP 화학발광 · 리포펙션 · 퓨로마이신
- 3부 카오트로프와 실리카 · Beer-Lambert · SYBR Green · 고정 · H&E · 형광 보정 · DAPI · Xenium
 41
🐁 동물실험 첫걸음
계산이 고른 유전자를 살아 있는 몸에서 확인합니다. C57BL/6N 에 폐암세포를 피하주사하고, 이틀마다 항-PD1 을 복강투여하고, 캘리퍼로 종양을 재고, 카플란-마이어 곡선을 그립니다.
왜 두 군이 아니라 네 군인가부터 시작해, L×W²/2 가 어디서 왔는지, n=7 이 어떻게 정해지는지, IACUC 계획서에 무엇을 적는지까지.
- 1부 접시로는 안 되는 것 · 동계이식 · 네 가지 암 모델 · IACUC 와 3R · 사육환경
- 2부 제모와 일정 · 피하주사 세포 수 · 항-PD1 200 µg · 아이소타입 대조군 · 2×2 설계
- 3부 무작위배정 · 캘리퍼와 종양부피 · 성장곡선 · 적출 무게 · 성장비
- 4부 카플란-마이어 · 로그순위 · ANOVA 와 본페로니 · 검정력과 n · 환자 코호트로 잇기
 42
🩸 인간화 마우스 첫걸음
항-PD1 은 사람 PD-1 에만 붙습니다. 마우스에는 붙지 않아요. 그러니 그 약을 시험하려면 마우스 안에 사람 면역계를 지어야 합니다.
면역을 지우는 유전자 셋, 사람 세포를 살려 두는 Sirpα, 조사량과 CD34⁺ 주사, 12주 뒤의 %hCD45, 그리고 실험을 끝내는 이종 GvHD 라는 시계까지.
- 1부 붙지 않는 열쇠 · scid 와 Rag 와 감마사슬 · Sirpα 와 CD47 · NSG·NOG·NRG·BRG
- 2부 hu-PBL·hu-CD34·BLT · 제대혈과 동원 말초혈 · 조사량 맞바꾸기 · 간내주사와 꼬리정맥
- 3부 %hCD45 · B 먼저 T 나중 · 종을 못 넘는 사이토카인 · MISTRG 와 NSG-SGM3 · 누구의 HLA
- 4부 이종 GvHD · CDX 와 PDX · 항-PD1 10 mg/kg · 유세포 패널 · 공여자를 블록으로 · 계획서 한 장
 43
💊 약동학 첫걸음
약은 용량으로 일하지 않습니다. 표적이 있는 자리의 농도로 일해요. 같은 100 mg 이 어떤 약은 30분 만에 사라지고 어떤 약은 사흘을 남습니다.
그 차이를 만드는 네 상수 — 청소율 · 분포용적 · 반감기 · AUC — 를 손으로 구하고, 마지막에는 마우스 자료 한 벌에서 사람 첫 투여 용량을 뽑습니다.
- 1부 용량과 농도 · ADME · 1차 소실과 반감기 · 분포용적 · 청소율 · AUC 와 사다리꼴
- 2부 경구 흡수와 Tmax · 생체이용률과 초회통과 · CYP 유도와 억제 · 단백결합 · 두 구획
- 3부 정상상태와 부하용량 · 간격과 골짜기 · 포화하는 소실 · 콩팥과 용량 보정
- 4부 종간 스케일링과 HED · Emax 와 이력현상 · 항체의 TMDD · NCA 실습 · 사람 첫 용량
 44
⚠️ 독성학과 GLP 첫걸음
효능 시험은 한 지점을 봅니다 — 이 용량에서 듣는가. 독성 시험은 곡선 전체를 봅니다 — 어디부터 해로운가.
용량군을 짜고, 고용량을 어디까지 올릴지 정하고, 혈액검사와 조직 소견을 읽고, NOAEL 을 손으로 정합니다. 그리고 그 기록을 믿을 수 있게 만드는 GLP 까지.
- 1부 용량이 독을 만든다 · 문턱과 기울기 · LD50 의 퇴장 · GLP 여섯 기둥 · 원자료
- 2부 ICH M3(R2) 한 벌 · 기간 매칭 · 종 고르기 · 용량군과 고용량의 근거 · 회복군과 위성군
- 3부 단회와 반복투여 · 체중과 사료 · ALT 와 BUN · 부검과 조직 등급 · adverse 판단
- 4부 독성동태와 안전역 · 유전독성 배터리 · 안전성약리와 QT · 생식발생과 발암성 · 13주 시험 종합
 45
🩺 임상시험 첫걸음
마우스에서 잘 들었습니다. 그래서 사람에게 얼마를, 몇 명에게, 무엇을 재면서 넣어야 할까요.
0상의 100 µg 부터 1상의 3:1 무작위배정·이중눈가림·용량 상승 규칙까지 설계도를 하나씩 뜯고, 마지막에는 말해도 되는 것과 안 되는 것에 선을 긋습니다. 재료는 2024년 Nature Biotechnology 의 TNIK 억제제 1상입니다.
- 1부 단계와 서류 · 첫 용량 산정 · 0상 마이크로도징 100 µg
- 2부 단회·반복 상승용량 · 3:1 무작위배정 · 이중눈가림 · 파수꾼 투여
- 3부 1차와 2차 평가변수 · 이상반응 등급과 중대성 · 음식 효과 · 1상 약동학
- 4부 헬싱키와 GCP · 등록부 · 건강한 참여자 · 작은 표본의 통계 · 말할 수 있는 것
 46
🏛️ 임상 2·3상과 허가 첫걸음
1상은 견딜 수 있다까지만 말합니다. 그 다음부터가 이 20강입니다 — 2상에서 용량을 고르고, 3상에서 몇 명이 필요한지를 계산하고, 무엇을 1차로 잴지 미리 못박고, 마지막에 서류를 쌓아 규제기관 앞에 섭니다.
재료는 폐가 굳는 병에서 2014년 10월 15일 같은 날 허가된 두 약입니다. 한쪽은 쌍둥이 3상이 둘 다 성공했고, 다른 쪽은 하나만 성공해 거절당한 뒤 시험을 하나 더 했어요.
- 1부 1상 다음 · 2상 용량탐색 · 대리 평가변수 · 임상적으로 의미 있는 차이
- 2부 검정력과 표본수 · 층화배정과 배정은닉 · 대조군 선택 · 비열등성 마진
- 3부 ITT 와 결측 · 중간분석과 DSMB · 쌍둥이 시험 · 다중성과 계층적 검정 · 하위군
- 4부 이득과 위해 · CTD 다섯 모듈 · 심사와 보완요구 · 허가사항 · 말할 수 있는 것
 47
🚰 역학과 관찰연구 첫걸음
/reg 는 무작위배정이 안 잰 것까지 균형을 맞춘다고 했고, /stat 은 조정이 잰 것만 걷어낸다고 했습니다. 이 20강은 그 다음 물음입니다 — 못 할 때는 어떻게 하는가.
담배를 피우게 배정할 수는 없습니다. 그런데도 스노는 세균을 모른 채 콜레라를 막았고, 흡연과 폐암은 시험 없이 결론에 닿았습니다. 어떻게 그럴 수 있었고 어디서 속는지 — 교란·선택·정보·불멸시간·충돌부 다섯을 손으로 돌려 봅니다.
- 1부 정할 수 없을 때 · 스노 1854 · 발생률과 유병률 · 코호트 · 환자-대조군
- 2부 단면과 생태학적 오류 · 위험도비와 오즈비 · 몇 배가 아니라 몇 명
- 3부 속는 길 다섯 — 교란 · 선택 · 정보 · 불멸시간 · 충돌부
- 4부 성향점수 · E-value · 힐의 아홉 관점 · 선별검사의 세 착시 · 시험과 어긋날 때
 48
💠 유세포분석과 조직 첫걸음
같은 종양을 두 번 봅니다. 갈아서 세고, 굳혀서 봅니다.
70 µm 체로 흩고, Fc 를 막고, 형광패널을 짜고, 게이트를 그어 CD8 T 세포를 셉니다. 그다음 같은 종양을 FFPE 로 굳혀 5 µm 로 자르고 H&E 로 물들여 전체슬라이드에서 TIL 을 셉니다.
마지막에는 논문이 알아낸 것에 닿습니다 — 같은 3.5%가 같은 3.5%가 아니다.
- 1부 세는 것과 보는 것 · 70 µm 해리 · 죽은 세포와 이중체 · Fc 차단
- 2부 형광의 기초 · 패널 설계 · 보정과 FMO · 산란광 · 게이팅 여섯 단계
- 3부 네 군 견주기 · FlowJo 와 게이트 재현 · CD45⁺ 분주 · 분주 스트레스
- 4부 FFPE · 5 µm 박절 · H&E · 분화 10초 · 전체슬라이드 스캔 · TIL 정량
 49
🧫 세포배양 첫걸음
논문의 모든 그림을 거슬러 올라가면 배양접시 하나가 나옵니다. 무균대 앞에 앉는 것부터 시작해 배지를 갈고, 계대하고, 세포를 세고, IncuCyte 로 증식곡선을 찍습니다.
세포를 기르는 손이 아니라 세포를 기를 때 정해지는 것들을 배웁니다 — DMEM 에 무엇이 들었는지, 계대수가 왜 중요한지, 보이지도 않는 마이코플라스마가 어떻게 결과를 뒤집는지까지.
- 1부 왜 세포부터인가 · 무균조작과 70% 에탄올 · DMEM·FBS·항생제 · 5% CO₂ 와 pH
- 2부 네 세포주의 역할 · 계대와 트립신 · 혈구계산판 · 얼리고 녹이기
- 3부 96웰 설계 · IncuCyte 컨플루언스 · 증식곡선의 세 구간 · 배가시간
- 4부 마이코플라스마 · 교차오염과 STR · 오염 사고 대응 · 실험노트 · 반복의 두 뜻
 50
✂️ 유전자 조작 첫걸음
논문은 Ddx54 하나를 두고 siRNA · shRNA · CRISPR 을 다 썼습니다. 번거로운 일인데 왜 그랬을까요 — 세 방법의 함정이 서로 다르기 때문입니다.
RISC 가 mRNA 를 자르는 자리부터 렌티바이러스 네 플라스미드, Cas9 이 자른 뒤 세포가 서툴게 붙이며 유전자를 망가뜨리는 대목까지 Table S1–S3 의 실제 서열로 따라갑니다.
- 1부 끄는 세 단계 · RNA 간섭과 RISC · Table S1 의 서열 · 스크램블 대조군 · 리포펙션
- 2부 넉다운의 시간창 · 넉다운 효율 읽기 · shRNA 머리핀 · 렌티바이러스 네 플라스미드
- 3부 293T 에서 바이러스 만들기 · 폴리브렌과 MOI · 퓨로마이신 죽음곡선 · 풀과 클론
- 4부 CRISPR 과 프레임시프트 · gRNA 스무 글자 · 오프타깃 · KD 와 KO 의 차이 · 검증
 51
🧷 분자 정량 첫걸음
「넉다운했다」 는 주장입니다. 재서 보여 줘야 증명이 됩니다.
RNA 를 뽑아 cDNA 를 만들고 SYBR 로 세는 길과, 단백질을 뽑아 항체로 잡는 길을 나란히 따라갑니다. ΔΔCt 를 손으로 계산하고, Table S4 의 항체 열넷을 경로별로 읽고, Fig. S9 의 전체 블롯에서 잘라낸 그림이 가린 것을 찾습니다.
- 1부 증명의 두 축 · RNase 와 실리카 컬럼 · NanoDrop 의 두 비 · cDNA 합성
- 2부 Table S5 의 프라이머 · 엑손 경계 설계 · SYBR Green · Ct 와 융해곡선
- 3부 기준 유전자 · ΔΔCt 손계산 · 표준곡선과 효율 · 용해버퍼 여섯 성분 · 인산화효소 억제제
- 4부 SDS-PAGE · 전사와 블로킹 · Table S4 의 항체 열넷 · 로딩대조군 · 포화 · 전체 블롯
 52
📦 시퀀싱 라이브러리 첫걸음
네 건식 강의는 모두 FASTQ 파일 하나에서 시작합니다. 그런데 그 파일이 어디서 왔는지는 아무도 다루지 않아요.
이 20강이 그 빈자리를 채웁니다 — QuantSeq 3′ · small RNA · 10x 5′ 단일세포 · Xenium 인시츄 네 가지를 만드는 손을 따라가고, 라이브러리를 만들 때 정한 것이 분석으로는 되돌릴 수 없는 제약이 된다는 것까지.
- 1부 FASTQ 는 어디서 오나 · 라이브러리의 구조 · RIN 과 DV200 · 네 방법 견주기
- 2부 어댑터 결찰 · 인덱스와 해밍 거리 · 브리지 증폭 · SBS 와 위상 어긋남 · 읽기 길이
- 3부 FASTQ 네 줄 뜯어보기 · QuantSeq 3′ 가 길이 보정을 없애는 법 · PAGE 크기선별
- 4부 10x GEM 과 UMI · 이중체율 계산 · Xenium 프로브와 결찰 · 전사체 수 정규화 · 넘기기
 53
🔆 Illumina 시퀀서 첫걸음
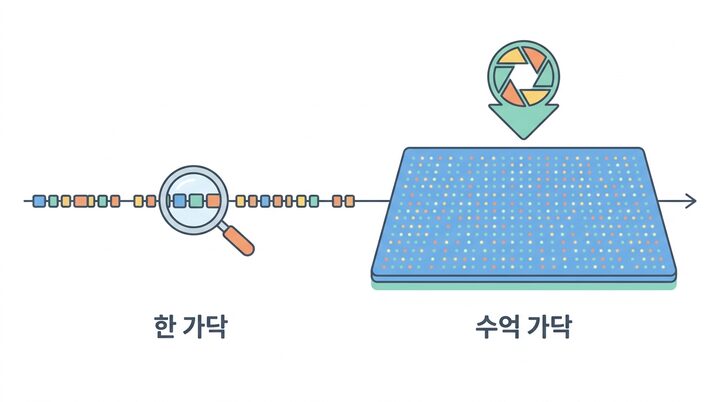
유리판 하나에 가닥 4억 개를 심고 한 글자씩 사진을 찍는 기계가 실제로 무엇을 하는지, 그 기계에 무엇을 얹어 주어야 하는지 — SBS 화학부터 카트리지와 1회용 소모품까지 열어 봅니다.
그다음 bulk RNA-seq 시료 여섯 개를 RNA 추출에서 화산그림까지 끌고 갑니다.
- 1부 왜 짧게 여러 번 읽나 · 장비 고르기 · SBS 세 동작 · 4색과 2색 · Q점수
- 2부 플로우셀과 %PF · 카트리지 여섯 시간 · 1회용 소모품과 시료당 값
- 3부 RNA 추출 · NanoDrop·Qubit·RIN · polyA 인가 rRNA 제거인가 · 인덱스 호핑
- 4부 BCL 은 세로로 적힌다 · FASTQ 네 줄 · 트리밍 · STAR 와 Salmon · 배치효과 · CPM·TPM·FPKM · DESeq2 · 종합
 54
💧 10x Genomics 첫걸음
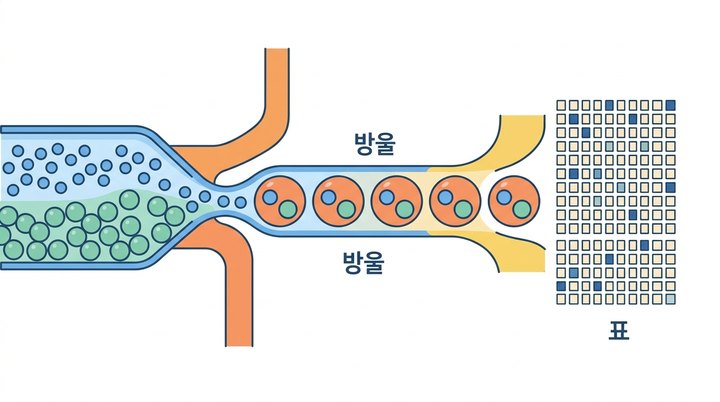
기름방울 하나에 세포 하나를 가두는 기계가 실제로 무엇을 하는지, 그리고 그 기계가 뱉은 파일이 어떤 바이트인지 직접 뜯어봅니다.
마지막에는 10x 가 공개한 PBMC 시료 하나를 기계에서 세포유형까지 끌고 갑니다.
- 1부 평균이 숨기는 것 · Chromium 과 칩 · 젤비드와 GEM · 세포바코드 680만 개 · UMI
- 2부 3′ 와 5′ · 벤치 위의 하루 · 넣는 세포 수와 이중체율 · R1 은 이름표 R2 는 내용
- 3부 Cell Ranger 여섯 단계 · matrix.mtx 세 파일 · HDF5 와 CSC · web_summary 열한 개 숫자
- 4부 무릎 그림과 EmptyDrops · 품질 문턱 셋 · 주변 RNA 와 이중체 · 정규화 · PCA 와 군집 · PBMC 종합
 55
📊 데이터 시각화 첫걸음
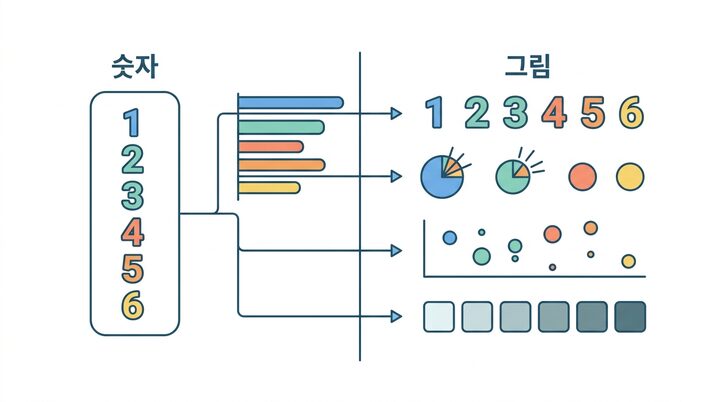
논문 한 편의 그림은 여덟 장, 그 안의 칸은 62개, 갈래는 열아홉 가지입니다. 막대부터 UMAP 까지 오늘날 쓰이는 그림이 거의 다 들어 있어요.
그 열아홉 가지를 진짜 자료로 직접 다시 그리며, 어떤 그림이 무엇을 감추고 어떤 그림이 사람을 속이는지 배웁니다.
- 1부 그림 62칸 전수조사 · 시각 통로와 정확도 순위 · 자료의 종류 · 점·선·막대 · 축 · 색
- 2부 막대 · 분포 네 가지 · 화산그림 · 히트맵 · 오차막대 · 생존곡선
- 3부 UMAP 과 밀도 · 점그래프 · 작은 배수 · 원그래프 · 그물그림
- 4부 잘린 축 · 이중 y축 · 고른 예시 · 원시 카운트에서 그림 한 장까지 · 내보내기 전 점검표
 56
🧮 TCGA 첫걸음
TCGA 는 내려받는 데 5분이면 됩니다. 어려운 것은 그다음이에요 — 이 표의 한 칸이 정확히 무엇을 센 숫자인가. 표본 12,591개 · 환자 11,081명 · 암종 33개의 임상표와 폐선암 566 표본의 변이 · TMB · 복제수 · 발현을 한 칸씩 직접 엽니다.
- 1부 바코드 스물여덟 글자 · 표본종류 · 한 사람 여러 줄 · 창구 넷 · counts 와 TPM · log2(x+1)
- 2부 빈칸의 세 가지 뜻 · 네 생존 종점 · MAF 한 줄 · TMB 의 사라진 분모 · 필터 · GISTIC 다섯 칸
- 3부 접수기관과 배치 효과 · 이수성·FGA·MSI · 상호배타와 아형 · 카플란-마이어 · 문턱 훑기 · 말할 수 있는 것
 57
➗ 종양 변이 부담 첫걸음
변이를 세어 나눈 숫자 하나가 면역항암제를 쓸지 말지를 가릅니다. 그런데 무엇을 셀지도, 분모를 얼마로 할지도 어디에 적혀 있지 않습니다. 폐선암 566명의 변이 13만 줄을 직접 세어 그 숫자를 만들고, 면역치료를 받은 1,661명의 생존자료로 시험합니다.
- 1부 MAF 한 줄 · 분모 30 Mb 되찾기 · 변이 종류 · 침묵변이 · VAF 와 깊이 · 손으로 만든 TMB
- 2부 분포와 로그 눈금 · 문턱 10 · 유전자 패널 · 패널 분모 되찾기 · 같은 환자 다른 검사
- 3부 33개 암종 사다리 · MSI · 수집 기관 효과 · 면역치료 1,661명 · 카플란-마이어 · 문턱 훑기 · 면역사막
 58
🤝 TCR-HLA 와 CD4·CD8 첫걸음
항체는 하나를 봅니다. T세포 수용체는 언제나 둘을 봐요 — 조각과, 그 조각을 들고 있는 접시. VDJdb 181,411줄과 HLA 대립유전자 24,518개를 직접 세어, 사람마다 다른 자리가 홈에만 있고 CD4·CD8 이 붙잡는 고리는 거의 안 변한다는 것을 확인합니다.
- 1부 pMHC 라는 짝 · 닫힌 홈과 열린 홈 · 도킹 극성 · 배선이냐 선택이냐 · 보조수용체가 잡는 곳
- 2부 18만 줄 열기 · HLA 제한 57% · 자리별 엔트로피 · 고리 일곱 글자 · 두 등급의 TCR 모양
- 3부 만 배 약한 결합 · 머무는 시간과 운동학적 교정 · Lck 배달 · 흉선의 편 가르기
- 4부 동종반응성 · 교차반응 · HLA-E 와 비고전 접시 · B2M 하나로 무너지는 클래스 I · 누가 볼 수 있나
 59
🧬 Perturb-seq 첫걸음
유전자 하나를 끄면 2만 개가 대답한다 — CRISPRi × scRNA-seq 로 CD4+ T세포 11,526개 유전자를 교란한 유전체 규모 스크린
- 1부 왜 Perturb-seq 인가 · 자르는 CRISPR 와 끄는 CRISPRi · CD4+ T세포 · 휴식·8시간·48시간 · 세포 하나의 레시피를 읽는다
- 2부 유전자 11,526개를 한 통에 · 무엇이 바뀌었나를 센다 · 유사벌크와 DESeq2 · 진짜로 꺼졌나 · 두 가이드가 같은 말을 하는가
- 3부 가장 강한 교란 — TADA2B 에서 CTLA4 까지 · 비슷하게 끊어지면 같은 팀이다 · 112개 클러스터를 탐험한다
- 4부 함정 셋 — 조건을 바꾸면 답이 바뀐다 · 세포가 적으면 결론이 흔들린다 · 오프타깃, 옆 유전자를 같이 끄다
- 5부 GWAS 주소에 보안 카메라를 단다 · 좋은 표적과 나쁜 표적 · 그림 3·4 를 처음부터 그린다 · 말할 수 있는 것과 없는 것
 60
🎯 인실리코메디신 첫걸음
약이 되기 전에 누군가 유전자 하나를 골랐습니다. 그 고르는 일이 표적 발굴이에요. 한 회사가 공개한 파이프라인 14개를 재료로, 유전자가 무엇인지부터 시작해 TNIK · WRN · MAT2A · KIF18A 같은 이름들이 각각 어떤 물음의 답이었는지를 하나씩 풉니다. 합성치사 · 경로 중독 · 면역 회피 — 발굴 논리 여섯 칸을 만들고 열넷을 거기에 꽂습니다.
- 1부 표적이란 무엇인가 · 유전자와 단백질 · 약이 붙을 홈 · 발굴 논리 여섯 칸
- 2부 TNIK 자료가 가리킨 이름 · 3CLPro 우리에겐 없는 효소 · PHD 몸이 이미 가진 스위치
- 3부 합성치사 다섯 · USP1 · WRN · MAT2A · CDK12 · KIF18A — 고장이 만들어 준 표적
- 4부 KAT6 · TEAD · FGFR2/3 경로 중독 · QPCTL · ENPP1 · DGKA 면역에 거는 표적 셋
- 5부 무너지는 다섯 가지 길 · 열넷에 직접 점수 매기기 · 말할 수 있는 것과 없는 것
 61
💀 WRN 표적 찾기 첫걸음
2019년 네 팀이 따로따로 같은 유전자에 도착했습니다. WRN. 아무도 미리 짐작하지 못한 이름이었고, 표를 끝까지 줄 세웠더니 맨 위에 있었을 뿐입니다. 그 표를 그대로 실었습니다 — 세포주 608개 × 유전자 17,097개. 20강에 걸쳐 손으로 다시 줄 세워 그 해의 발견을 재현합니다. t 로 세우면 WRN 은 7등이고, 표적의 자격을 걸면 1등입니다 — 그 한 문장이 이 강의의 절반입니다.
- 1부 유전자 하나를 끄면 · 합성치사 · MSI · CRISPR 스크린 · 유전자 효과 점수
- 2부 의존성 지도 · 표를 가른다 · 웰치 t · 줄 세우기 · 화산 그림
- 3부 다중검정과 FDR · 공통필수 거르기 · 조직 쏠림 · 층화 · 혈액 아홉 개
- 4부 길어진 TA 반복 · 어느 손을 묶나 · 문턱과 환자 수 · 2019년 재현 · 정리
 62
🎯 Perturb-seq 신약개발 첫걸음
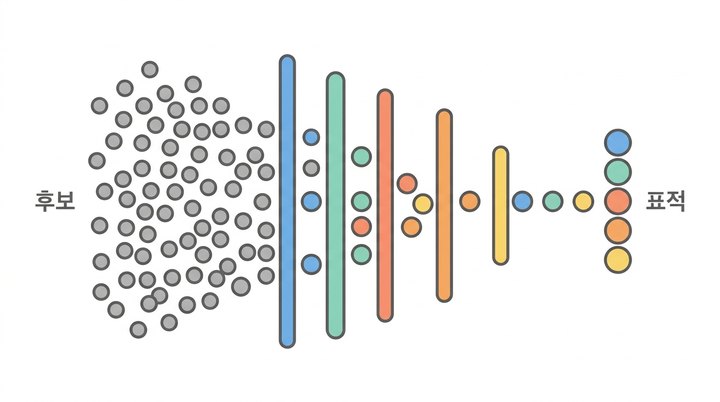
신약개발에서 가장 비싼 실수는 틀린 표적을 고르는 것이 아니라 옳은 표적을 틀린 세포에서 시험하는 것입니다. 살아 있는 Perturb-seq API 에 실제 신약 파이프라인 표적 15개를 넣어 그 실수를 직접 저질러 본 뒤, 이 자료가 진짜로 답할 수 있는 표적으로 옮겨 갑니다. 파이썬으로 API 를 두드리는 도구를 손수 만들고, 위젯으로 섭동을 미리 돌려 봅니다.
- 1부 표적은 맞았는데 아무 일도 없었다 · Perturb-seq · CRISPRi · 이 스크린
- 2부 API 첫 요청 · 파이썬으로 도구 만들기 · 파이프라인 15개를 넣어 본다
- 3부 0 을 읽는 법 · 세포가 곧 맥락 · 상태가 결론을 뒤집는다 · 녹다운과 세포 수
- 4부 클러스터 · 질환 연관 · 표적 견주기 · 섭동 시뮬레이터 · 함정 다섯 · 종합 실습
 63
🧲 표적 발굴 첫걸음
유전자 만 개를 껐습니다. 어느 것이 표적입니까. 가장 크게 흔들린 것은 대개 표적이 아니라 독성입니다 — 모든 세포에 필요한 유전자니까요. 질환 신호 만들기부터 역방향 점수 · 세포주기 보정 · DepMap 안전 체 · 조직 제한성 · 약물성 · 사람 유전학까지 네 겹의 체를 손수 만들고, 실제 CRISPRi 스크린 자료 135개를 통과시킵니다. 135 → 129 → 115 → 103 → 87 → 54.
- 1부 왜 표적인가 · 상관은 인과가 아니다 · 질환 신호 · 세포 모델 · 교란 방식
- 2부 라이브러리 설계 · 검정력 · 넉다운 자기검사 · 에너지 거리 · 역방향 점수
- 3부 세포주기라는 가짜 히트 · 기능 클러스터 · 마스터 조절자 · DepMap · 조직 제한성
- 4부 약물성 · 사람 유전학 · 함정 다섯 · 표적 순위 매기기 · 검증 사다리
 64
🗃️ GEO 첫걸음
세상의 실험실이 이미 만들어 놓은 발현 자료가 870만 표본 쌓여 있습니다. 그것으로 표적을 찾을 수 있을까요. 폐가 굳는 병의 실제 공개 자료 넷을 내려받아 눈금을 맞추고 합치고 순위를 매기는 일을 손으로 합니다. 한 시리즈는 값이 96,841까지 가고 다른 하나는 −8.3부터 시작해요. 그리고 어디서 이 방법이 거짓말이 되는지도 봅니다 — 한 연구의 '정상'은 사실 폐암 환자였습니다.
- 1부 왜 남의 자료인가 · 등록번호 · 플랫폼 · 시리즈 매트릭스 · 누가 환자인가
- 2부 눈금 맞추기 · 프로브 접기 · 차등발현 · 효과크기 · 합치기 · 이질성
- 3부 무작위효과 · FDR · 부호 일치 · 배치효과 · '정상'의 정체 · 공개편향
- 4부 발현 ≠ 표적 · TNIK 을 못 찾은 이유 · 종합 실습 · 말할 수 있는 것
 65
🧵 SRA 첫걸음
공개 발현 자료의 숫자에는 그것을 올린 사람의 처리 결정이 이미 박혀 있고, 되돌릴 수 없습니다. 그 숫자를 만들기 전의 것 — 기계에서 갓 나온 서열 조각 — 이 SRA 에 있어요. 실제 run 713개의 메타데이터를 받아 와 뜯어봅니다. RNA-Seq 안에서만 라이브러리 선택이 여덟 가지, 깊이는 4,828배 차이, 그리고 Disease 칸은 100% 비어 있었습니다.
- 1부 남의 숫자에는 남의 결정 · 등록번호 · runinfo 마흔일곱 열 · 라이브러리 전략
- 2부 PolyA 대 리보솜 제거 · 레이아웃과 길이 · 깊이 4,828배 · FASTQ 네 줄
- 3부 Disease 칸이 비어 있다 · 라벨 찾아 세 곳 건너기 · 파이프라인 · 정규화
- 4부 다시 처리해도 남는 것 · 4.4 테라바이트 · 재처리 자원 · 언제 내려가는가
 66
⚡ Answer ALS 첫걸음
루게릭병에는 병을 멈추는 약이 없습니다. 약을 만들 자리를 아직 모르기 때문이에요. 한 회사가 그 자리를 찾겠다며 자료를 두 층으로 겹쳤습니다 — 죽은 사람의 척수와, 살아 있는 환자의 피에서 만든 운동신경세포. 왜 하나로는 안 되는지를 공개 자료 다섯 벌로 확인합니다. 같은 환자의 같은 척수를 두 방식으로 쟀더니 효과크기의 상관이 0.43 이었어요.
- 1부 표적이 없는 병 · 운동신경세포 · SOD1 을 알아도 표적이 안 되는 이유 · 사후 조직
- 2부 어긋난 특성 줄 · 읽히지 않는 사후지연 · 같은 사람이 두 번 · 조직 불일치
- 3부 합친 결과 · 상위가 전부 면역 · 세포 구성인가 · GFAP 의 I² 92.5% · 상관 0.43
- 4부 iPSC 운동신경세포 · Answer ALS 네 겹 · 두 층 겹치기 · 검증된 여덟 중 하나
 67
📍 GWAS 카탈로그 첫걸음
사람 유전학이 뒷받침하는 표적은 임상 성공률이 두 배라고 합니다. 그 '뒷받침' 이 정확히 무엇인지를 실제 자료로 확인합니다. GWAS 카탈로그 연관 119만 건과 TCGA 암 체세포 변이를 직접 내려받아, 오즈비 중앙값이 1.14 인 것부터 폐선암에서 TTN 이 KRAS 보다 자주 변이되는 착시까지 손으로 뜯어봅니다.
- 1부 유전 증거의 값어치 · GWAS 의 얼개 · 카탈로그 119만 건 · 5×10⁻⁸ 은 어디서
- 2부 오즈비 중앙값 1.14 · 연관불평형 · MAPPED_GENE 함정 · MUC5B · C9orf72 · 조상 쏠림
- 3부 체세포 변이 · TTN 48%의 착시 · 길이로 나누기 · 핫스팟 · 방향 읽기
- 4부 증거를 점수로 · 없다는 것의 뜻 · 두 병에 실제로 무엇이 있나 · 종합
 68
🫁 TNIK 발견 따라하기
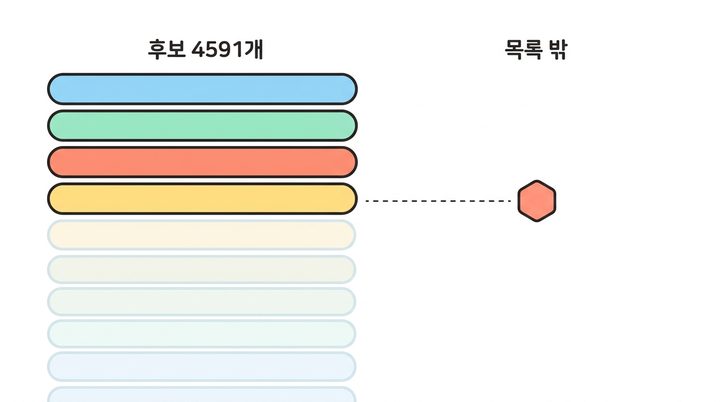
특발성 폐섬유증의 표적 후보는 4,591개였습니다. 실제로 약이 된 TNIK 은 그중 300등 안에도 없습니다. PubMed 로 세면 발견 당시 IPF 논문이 0편이고, 환자 폐조직 발현 메타분석도 상위 600 밖입니다. 그런데 그 유전자가 약이 되어 2a상까지 갔어요. 살아 있는 API 셋(Open Targets · PubMed · Perturb-seq)을 파이썬으로 두드려 그 순위를 직접 다시 매기고, 어느 손잡이를 돌려야 TNIK 이 1등이 되는지 찾아냅니다. 그리고 인과를 확인하러 갔다가 틀린 세포를 만납니다.
- 1부 폐가 굳는 병 · 이미 있는 약 둘 · 표적 하나가 정하는 것 · 근거의 일곱 갈래 · Open Targets
- 2부 순위의 오염 · TNIK 은 목록에 없다 · PubMed 로 세는 새로움 · 손잡이 하나 · 발현의 사각지대
- 3부 Perturb-seq API · 후보를 전부 껴 본다 · Wnt 와 SMAD1 · 약물성 여덟 칸 · 껐는데 아무 일도
- 4부 침묵의 세 종류 · 자료가 답하는 질문 · 18개월과 78명 · 2a상 71명 · 말할 수 있는 것과 없는 것
 69
🔗 체세포 변이 데이터베이스 첫걸음
변이 하나를 다섯 군데서 찾으면 답이 다섯 개 옵니다. 좌표가 다르고 이름이 다르고 판정이 다릅니다. 그런데 실무에서 하는 일은 대부분 이어 붙이기예요 — COSMIC 의 재발성을, ClinVar 의 판정을, gnomAD 의 빈도를 내 표에 붙이는 것. 그 조인이 어긋나면 오류 없이 없던 결론이 생기고 있는 결론이 사라집니다. 실제 MAF 982줄 안에서 이미 단백질 이름 17개가 유전체 좌표 여럿을 가리킵니다. 조인 키 · HGVS · 빌드 · 좌측정렬부터 핫스팟 · 길이 보정 · 드라이버 판별까지 손으로 세어 봅니다.
- 1부 다섯 개의 답 · 데이터베이스 지도 · 생식세포와 체세포 · 조인 키 · rs 번호
- 2부 HGVS 세 층 · hg19 와 hg38 · 유전자 개명과 엑셀 · 좌측정렬 · 실제로 이어 붙이기
- 3부 재발성 · 핫스팟의 모양 · 길이로 나누기 · 운전자와 승객 · 켜짐과 꺼짐
- 4부 데이터베이스의 편향 · 패널이 본 것만 · VAF 와 생식세포 거르기 · 변이 카드 · 조인 점검표
 70
🧭 인실리코 표적발굴 실습
어느 회사의 공개 파이프라인에 이런 줄이 있습니다 — “PHD 억제제, 염증성 장질환과 만성콩팥병”. 그런데 자료를 두드려 보면 그 표적은 장질환과 이어진 7,629개 중 상위 500 안에 없고, 논문은 한 편입니다. 콩팥병에서는 14등인데, “이미 약이 있다” 한 칸을 빼면 400등으로 내려앉습니다. 살아 있는 자료원 넷(Open Targets · ChEMBL · ClinicalTrials.gov · PubMed)을 파이썬으로 두드려 그 간극을 직접 재고, 표 밖에 무슨 근거가 있는지 찾아냅니다. 그리고 세상에 딱 한 건뿐인 그 임상시험을 검색으로 잡아냅니다.
- 1부 한 줄이 묶은 두 병 · 산소를 재는 눈금자 · 산소가 재료다 · 발굴 논리 여섯 칸 · 표적 칠천 개
- 2부 콩팥병에서 14등 · 셋의 점수가 똑같다 · 한 칸 빼면 400등 · 장질환에는 없다 · 논문 한 편
- 3부 유전 근거는 피를 가리킨다 · 장은 원래 저산소다 · ChEMBL 3,879건 · 빈칸투성이 선택성 · 측정값 0건짜리 칸
- 4부 허가된 것과 라벨 없는 것 · 먼저 넘어진 약 236명 · 세상에 딱 한 건 · 내 점수판 · 비워 둔 칸
 71
👃 반전유두종에서 암까지
코 안쪽의 반전유두종은 조직검사로는 암이 아닙니다. 그런데 열에 하나에서 넷은 암이 되고, 어느 것이 될지는 현미경으로 알 수 없습니다. 한 논문이 환자 11명에게서 정상 점막 · 혹 · 암 세 조각을 짝지어 떠서 엑솜 · RNA · 미토콘드리아를 한꺼번에 읽었더니, 세 자가 서로 다른 답을 냈습니다 — 돌연변이는 열 중 다섯에서만 이어졌고, 미토콘드리아는 한 건도 겹치지 않았는데, 발현은 2,692개 유전자가 계단처럼 올랐습니다. 그 어긋남을 직접 재고, 마지막에 AI 가 뽑은 표적 목록을 손으로 다시 만듭니다.
- 1부 십만에 한 명 · 착한 혹 · 짝지어 뜨기 · 파라핀 · 자 세 개
- 2부 화산 그림 · 계단을 재는 자 · 상위 200개 · GSEA · iPANDA
- 3부 변이 세는 규칙 · 익숙한 이름 · 거르개가 지운 EGFR · 열 중 다섯 · 염색체 덩어리
- 4부 겹치지 않은 미토콘드리아 · HPV 한 명 · 글을 뺀 점수 · 두 층의 표적 · 빈칸
 72
🧩 단백질 구조 예측 첫걸음
PDB 에 구조가 없는 단백질에 약을 붙이려면 먼저 모양을 지어야 합니다. 그런데 예측 서버는 어떤 서열을 넣어도 좌표를 뱉습니다 — 틀린 서열을 넣어도요. 그래서 이 20강은 짓는 법 여섯 강 뒤에 재는 법 다섯 강을 곧바로 붙였습니다. α나선·β병풍부터 주형 검색 · I-TASSER · ProSA Z-score · Verify3D · 라마찬드란 · 예상 RMSD · 활성부위 druggability 까지. 실제 논문의 값으로 —가장 선호 영역 67.4%, 금지 영역 5잔기, Drug Score 0.84.
- 1부 왜 지어야 했나 · 네 층 · α나선과 β병풍 · 고리의 유연성 · 이황화결합
- 2부 GOR4 와 PROMOTIF · 세 갈래 길 · 주형이 절반만 · I-TASSER · 여섯 도구의 합의
- 3부 ProSA Z-score · Verify3D 97.16% · 라마찬드란 67.4% · RMSD 1.5 Å · 구조 다듬기
- 4부 CD-Search 와 E-value · 가짜 인산화효소 · 주머니 찾기 · Table 1 다시 읽기 · 한계
 73
🔗 도킹과 분자동역학 첫걸음
화합물 45,000개에서 하나를 골랐습니다. 그 하나를 얼마나 믿어야 합니까. ZINC · LigPrep · HTVS/SP/XP · AutoDock Vina · ADMET · GROMACS · MM-PBSA 를 한 논문의 실제 값 위에서 따라가며, 도킹 점수 −20.66 kcal/mol 이 왜 자유에너지가 아닌지, 왜 탄닌이 1등을 했는지, 결합에너지 484 kcal/mol 이 왜 있을 수 없는 값인지를 직접 계산합니다. 45,000 → 7,779 → 300 → 50 → 10.
- 1부 깔때기 · ZINC · 리간드 준비 · 자세와 점수 · 점수함수 · 무엇을 움직일 것인가
- 2부 HTVS→SP→XP · 두 눈금 · 2D 상호작용 그림 · 리핀스키 · ADMET
- 3부 탄닌이 1등을 했다 · 리간드 효율 · PAINS · MD 가 주는 시간 · 상자와 힘장
- 4부 평형화 · RMSD 는 평평해졌나 · RMSF 와 경첩 · 점유율 · MM-PBSA · 실험으로 넘기는 문턱
 74
💉 맞춤형 mRNA 암 백신 첫걸음
개 한 마리의 종양과 피를 통째로 읽으면 200기가바이트가 나옵니다. 다섯 달 뒤 그 파일은 0.5밀리리터짜리 투명한 액체가 되어 주사기에 담겼습니다. 소설 『코딩 포 로지』가 그 다섯 달을 들려준다면, 이 20강은 그 안의 숫자를 직접 만져 보게 합니다 — 문턱을 옮기면 94.3%가 달라지고, 깊이를 낮추면 VAF가 흔들리고, PEG를 늘리면 크기와 봉입 효율이 서로 반대로 움직입니다. 체세포 변이 부르기 · Mutect2 · VEP · RMSD · OpenMM · NetMHCpan · 서열 설계 · IVT 와 RIN · SM-102 · LNP · DLS · 엔도솜 탈출. 200 GB → 4,847 → 3 → 91 nm.
- 1부 이야기의 지도 · 크기의 자 · 정렬과 커버리지 · 체세포 변이 부르기 (Mutect2)
- 2부 VEP 와 consequence · 운전자와 승객 · AlphaFold 와 pLDDT · RMSD 는 어디서 재나
- 3부 DFG-in/out 과 약제 내성 · 표면 노출 · OpenMM 100 ns · NetMHCpan 과 나노바디
- 4부 서열 설계와 MITD · 코돈 최적화 · IVT 와 RIN · SM-102 의 pKa · LNP 와 DLS · 엔도솜 탈출 · n=1 의 한계
 75
🫧 엔도솜 탈출 첫걸음
세포가 지질나노입자를 삼켰습니다. 그런데 삼켜진 것은 아직 세포 안이 아닙니다 — 막 하나가 여전히 가로막고 있어요. 그 막을 뚫고 나오는 것은 백 개 중 한두 개뿐이고, 나머지는 리소솜에서 잘립니다. mRNA 백신에서 가장 안 풀린 문제가 여기입니다. 그 한두 개가 어떻게 빠져나오는지를 분자 수준에서 따라가는 20강 — 폴리전해질 복합체 · pKa 와 겉보기 pKa · 엔도솜 형성과 성숙 · BMP 이온쌍 · 원뿔과 헥사고날 II 상 · 양성자 스펀지 가설. 다루는 시간은 삼십 분입니다.
- 1부 백 개 중 하나 · 폴리전해질과 매닝 응축 · 반대이온 방출 · pKa 와 완충 능력
- 2부 겉보기 pKa 와 TNS · 밀리초 자기조립 · 단백질 코로나와 옵소닌 · PEG 딜레마와 ABC
- 3부 클라트린과 오일러 공식 · 엔도솜의 위상 · 되나가는 60~70% · V형 양성자 펌프
- 4부 BMP 이온쌍 · 패킹 파라미터와 원뿔 · 헥사고날 II 상전이 · 양성자 스펀지 논쟁 · 타이밍의 창 · 6.68 → 6.41
 76
🫘 림프절 첫걸음
백신이 하는 일은 주소를 알려 주는 것까지입니다. 나머지는 림프절에서 일어납니다. 수지상세포 하나가 항원 조각을 들고 도착하는데, 그 조각을 알아보는 T세포는 백만에 하나쯤이에요. 그런데 며칠 안에 찾아지고, 그 하나가 수십만 개의 킬러 T세포가 되어 종양으로 떠납니다. 그 며칠을 분자 수준에서 따라가는 20강 — 검색 문제 · 성숙과 위험신호 · 신호 1·2·3 · 면역 시냅스 · 도미노와 세 줄기 · IL-2 자가분비 · Rb 브레이크 · 클론 확장 · CTL 무장.
- 1부 주소를 넘긴 뒤 · 검색 문제(10¹⁸ 대 10⁹) · 수지상세포 · 성숙과 위험신호
- 2부 CCR7 나침반 · 만나도록 지어진 건물 · HEV 네 단계 · 순찰과 만남의 확률
- 3부 신호 1(동역학적 교정) · 신호 2(두 번째 악수) · 신호 3(방향) · 면역 시냅스
- 4부 도미노 · 세 줄기와 AND 게이트 · IL-2 자가분비 · Rb 브레이크 · 클론 확장 · 무장 · 출발
 77
🗡️ CD8⁺ 세포독성 T 림프구 첫걸음
림프절에서 수십만 개의 킬러 T세포가 만들어졌습니다. 그런데 만드는 것과 배달하는 것은 다른 문제입니다. 면역치료가 실패하는 가장 흔한 자리가 바로 여기예요. 무장을 마친 CTL 이 림프절을 떠나 종양에 닿고, 세포 하나를 해체하기까지를 분자 수준에서 따라가는 20강 — 나침반 교체 · 케모카인 항법 · 접착 네 단계 · 내피 무반응 · 기질을 뚫는 MMP · 표적 인식 · 킬러 시냅스와 MTOC 조준 · 퍼포린 고리 · 그랜자임 B · 카스파아제 폭포 · 되돌릴 수 없는 지점 · 조용한 죽음 · 재장전 · 에피토프 스프레딩.
- 1부 무장 · 나침반 교체와 림프절 탈출 · 1분에 한 바퀴 도는 혈류 · 케모카인 점화 문제
- 2부 접착 네 단계 · 내피 무반응 · 핵이 정하는 3 µm 문턱 · 흔한 표적을 처리하는 탐색
- 3부 만들면 잘리고 잘리면 걸린다 · 드라이버 변이의 역설 · PD-L1 이 누르는 천장 · 킬러 시냅스
- 4부 MTOC 조준 · 퍼포린 16량체와 칼슘 잠금 · 안전핀을 뽑는 그랜자임 B · 카스파아제 폭포
- 5부 MOMP — 되돌릴 수 없는 지점 · 조용히 죽어야 하는 이유 · 재장전 · 에피토프 스프레딩 · 왜 다 죽이지 못하나
 78
🐕 애완견 비만세포암 치료제 첫걸음 I
마틴 스미스가 폴에게 던진 세 질문이 있습니다. 개의 MHC 가 사람과 다르다는 것을 고려했는가. CanFam3.1 참조 유전체를 이해하고 있는가. GATK 파이프라인에서 개 유전체의 특수성을 어떻게 다룰 것인가. 이 20강은 그중 둘째와 셋째에 답합니다 — 비만세포종이라는 병 · 등급과 병기 · KIT · 개의 참조 유전체 다섯 판 · FASTQ 네 파일 · BWA-MEM 과 minimap2 · SAM 플래그와 CIGAR · MAPQ 0 · 짝과 인서트 · 중복표시 · 커버리지 · BQSR 을 왜 건너뛰나. 끝나면 믿을 만한 BAM 하나가 남습니다.
- 1부 마틴의 세 질문 · 비만세포와 탈과립 · 등급과 병기 두 축 · KIT 의 네 토막 · 품종과 연관불평형
- 2부 CanFam3.1 에서 Dog10K 까지 다섯 판 · FASTA 와 .fai ·
chr13인가13인가 · 1부터인가 0부터인가 - 3부 파일 네 개와 뺄셈의 이유 · FASTQ 네 줄과 Phred · 깊이 30× 와 60× · 필요한 깊이를 거꾸로 계산
- 4부 씨앗과 확장 · BWA-MEM 과 minimap2 · SAM 플래그·CIGAR · MAPQ 0 은 못 붙인 게 아니다 · 인서트와 구조변이
- 5부 중복이 만드는 없는 확신 · 평균이 감추는 커버리지 · 개에서 BQSR 을 건너뛰는 이유 · 코드랩 0~3단계
 79
🐾 애완견 비만세포암 치료제 첫걸음 II
I 권이 만든 BAM 두 개를 이어받습니다. 여기서 하는 일은 뺄셈 하나예요 — 종양에는 있고 혈액에는 없는 것. bcftools mpileup 과 call · VCF 여덟 열과 AD/DP/GT · 문턱 옮기기 · VAF 0.847 이 왜 0.5 가 아닌지 · 이형접합성 소실 · 순도와 배수성 · VEP · 드라이버와 승객. 그리고 마틴의 첫째 질문 — DLA. 개의 MHC 는 사람만큼 알려져 있지 않고, 화면에 나오는 예측값에는 보이지 않는 오차 막대가 붙어 있습니다. 4,847 → 3.
- 1부 리드를 세로로 쌓는다 ·
-Q와-q는 다른 것을 잰다 · 다수결이 아니라 확률 · VCF 여덟 열 - 2부 FORMAT 과 시료 열 ·
./.는0/0이 아니다 · 뺄셈의 네 문턱 · bcftools 와 Mutect2 의 차이 - 3부 VAF 는 리드의 비율이지 세포의 비율이 아니다 · 0.847 이 말해 준 것 · 순도·배수성 · BAF 갈라짐 · 문턱을 옮기면
- 4부 VEP 와 전사체 고르기 · 4,847 을 가장 크게 자르는 단계 · 드라이버 증거 넷 · 왜 하나가 아니라 셋인가
- 5부 DLA-88 과 사람 HLA · 보이지 않는 오차 막대 · 아홉 글자와 %rank · 차등 아그레토프 · 개의 코돈 · n 이 하나라는 것
 80
🏭 mRNA 즉석 합성기 첫걸음 I
62.5 × 50.0 × 32.5 cm — 큰 프린터만 한 상자입니다. 왼쪽에 DNA 주형 4.8 ng 을 넣고 여덟 시간 뒤 오른쪽에서 지질나노입자에 싸인 mRNA 300 µg 을 받습니다. 그 사이의 여섯 걸음을 하나씩 뜯습니다 — 펠티에와 ‘받침 먼저 액체 나중’, 비오틴과 자성 비드, rGTP 만 8분의 1로 굶기는 이유, HMM 모듈의 ±0.5 °C, DNase 와 poly(A) 꼬리, oligo d(T) 정제, 어긋난 헤링본 칩과 111.1 nm, eGFP 와 SARS-CoV-2 RBD, 그리고 상용기의 70%. 마지막 강은 이 논문이 재지 않은 것을 표로 남깁니다.
- 1부 여섯 걸음과 온도표 · 주형의 세 조각 · 왜 플라스미드가 아니라 PCR 인가 · 4.8 ng 에서 시작
- 2부 펠티에와 받침 먼저 액체 나중 · 1.8 / 2.6 °C/s · 비오틴–스트렙타비딘 · ‘띠가 없다’ 가 보장하는 것
- 3부 rGTP 만 8분의 1 · 캡과 시작 자리 경쟁 · HMM 의 ±0.5 °C 와 자석 90초 · DNase 와 E-PAP
- 4부 oligo d(T) 는 꼬리만 본다 · 소금이 두 번 바뀌는 이유 · 308·198·324 µg 과 n=3 의 한계
- 5부 SHM 칩과 유량비 1:3 · 111.1 nm · PDI 0.203 · RBD 319–541 · 상용기의 70% · 안 잰 것 아홉 가지
 81
🌊 mRNA 즉석 합성기 첫걸음 II
I 권의 상자가 남긴 물음 넷을 흐름으로 다시 풉니다. 병목은 만드는 데가 아니라 만든 뒤에 치우는 데 있었습니다. 150 µL 반응액 한 덩이를 3.8 m 모세관에서 왕복시키는 진동 IVT, 폴리도파민을 입힌 PES 막에 붙박은 DNase, 다중모드 모놀리스와 93.3% 회수, 그리고 시계가 아니라 pH·전도도가 여는 다음 걸음. 6시간이 2시간으로, 641 µg 이 1275 µg 으로, dsRNA 가 5분의 1로. 마지막 강은 “약 40회분” 이라는 함정을 다룹니다.
- 1부 하류 공정이 병목이다 · 배치 IVT 가 지는 셋(섞임·열·피로인산이 Mg²⁺ 을 물어간다)
- 2부 다섯 토막 플러그 · 3.8 m 를 왕복 · 세르펜타인 믹서와 층류 · 분광계가 밸브를 뒤집는다 · 3310 대 955
- 3부 PES 30 nm 를 고른 이유 · 접촉각 68°→26° · XPS N 1s 5.22→7.70→10.17 · 세 바퀴 5분 · 다섯 번 써도 98%
- 4부 모놀리스와 대류 전달 · 시계 대신 센서와 안정 조건 · 완충액 A·B·C · oligo-dT 는 왜 졌나 · 정용여과
- 5부 Table 1 여덟 조합 · dsRNA 83.3% 감소는 지운 것이 아니라 덜 만든 것 · 43초 봉우리 · 40회분의 함정
 82
⚖️ mRNA 즉석 합성기 첫걸음 III
I 권은 상자 하나를, II 권은 흐름 라인 하나를 따라갔습니다. 이 권은 둘을 나란히 놓고 고르는 법을 익힙니다. 단위조작이라는 생각, 4.8 ng 이 300 µg 이 되는 물질수지, 수율·순도·시간의 삼각형, 생산성 98.6 → 637.5 µg/h, 암달의 법칙으로 병목 찾기, 규제 검사표에서 두 논문이 비워 둔 칸, 왜 포장은 아직 통합되지 않았나, “40회분” 에 숨은 여섯 가정, 키우기와 늘어놓기. 마지막에는 요구사항 넷을 넣으면 모듈 구성이 따라 나오는 설계 연습을 합니다.
- 1부 두 기계를 한 표에 · 단위조작이라는 생각 · 블록마다 시간과 손실을 붙이면 병목이 보인다
- 2부 물질수지 — 질량은 전부 NTP 에서 온다 · 수율·순도·시간의 삼각형 · A260/230 이 못 잡는 것
- 3부 생산성 98.6 → 637.5 µg/h · 암달의 법칙 · 열·섞기·붙잡기 · 붓는 효소와 붙박은 효소
- 4부 규제 검사표 열한 항목 — 둘 다 절반을 못 채운다 · 용매의 사슬 · “40회분” 의 여섯 가정
- 5부 키우기 vs 늘어놓기 · RNase 다섯 겹 · SCADA/MES 와 1~2초 로깅 · 설계 연습과 검산 습관 여덟
 83
🧾 mRNA 합성 시약 첫걸음
논문의 방법 문단 한 단락에는 시약이 서른 가지 들어 있습니다. /msyn 이 같은 논문의 기계를 따라갔다면, 이 강의는 통 안에 든 것을 따라갑니다 — 물과 DEPC, RNase 억제제 0.5 U/µL, Tris 와 EDTA, NaCl 0.72 M 과 LiCl 1.6 M, LA Taq 과 Mg²⁺, dNTP 는 200 nM 인가 200 µM 인가, 비오틴 프라이머, 주형 4.8 ng, 스트렙타비딘 비드, T7 혼합이라는 닫힌 상자, rNTP 넷과 굶긴 rGTP, 이름이 적히지 않은 캡 유사체, RQ1 DNase, E-PAP 과 MnCl₂, oligo d(T)₂₅, 지질과 에탄올, 그리고 재는 시약. 마지막 강은 시약표의 빈칸을 세어 재현 가능성을 숫자로 만듭니다.
- 1부 효소는 넷뿐이다 · 물·튜브·표면을 서로 다르게 다루는 이유 · 억제제 0.5 U/µL
- 2부 Tris 를 20·40·10 mM 로 따로 잡는 까닭 · 온도가 pH 를 움직인다 · NaCl 과 LiCl 이 갈리는 자리
- 3부 같은 문장의 200 nM 이 한쪽만 어긋난다 · 4.8 ng 을 분자 수로 · 비오틴 프라이머가 공정을 정했다
- 4부 T7 혼합의 절반은 논문에서 알 수 없다 · rGTP 가 천장인 이유 · 캡 종류가 63% 와 42% 를 가른다
- 5부 Mn²⁺ 와 EDTA 의 다툼 · 꼬리만 보는 정제 · 【실습】 다섯 통 조제 · 시약표의 빈칸 세기
 84
💰 mRNA 백신 합성기 원가분석 첫걸음
논문은 연동펌프 7 · 밸브 6 · 저장통 11 까지 적고 값은 한 군데도 적지 않습니다. /msyn 의 기계와 /reag 의 시약을 부품표 한 장으로 펴고, 칸마다 2026년 9월 시장가를 붙여 다시 만들면 얼마인지를 끝까지 계산합니다 — 1,250원짜리 자석이 119만원짜리 랙을 대신하고, 6만원짜리 헤링본 칩을 미는 장비는 값이 공개되지 않으며, 상자만이면 31~57만원, 한 배치 300 µg 의 시약은 22~34만원, 배치를 쉰 번 돌리면 장비값은 1.5% 로 내려갑니다. 마지막 강은 채우지 못한 빈칸 열일곱을 세어, 무엇을 저자에게 묻고 무엇을 벤더에게 물어야 하는지 가릅니다.
- 1부 부품표의 일곱 칸 · 출처와 확인일이 없으면 소문이다 · 원가의 경계 셋
- 2부 여섯 걸음인데 모듈은 둘 · 펠티에와 PT-1000 · 아끼면 안 되는 줄은 어디인가
- 3부 자석 1,250원 대 랙 119만원 · 칩은 6만원인데 미는 장비는 견적제 · 상자만 31~57만원
- 4부 키트로 사면 7.3배 · Cap 1 이 Cap 0 보다 싸다 · 지질 한 줄이 LNP 값의 97%
- 5부 원가 1위는 효소가 아니라 비드 · 배치 50회면 장비값은 1.5% · 빈칸 열일곱을 센다
 85
⚙️ mRNA 백신 합성기 메카니즘
62.5 × 50.0 × 32.5 cm 상자 하나에 연동펌프 일곱 · 전자밸브 여섯 · 저장통 열하나가 들어 있습니다. /msyn 이 이 논문의 공정을 따라갔다면, 이 강의는 부품을 하나씩 집어 듭니다 — 핀치밸브와 다중포트 밸브, 연동펌프의 맥동, 흔들지 않고 섞는 플런저 펌프, FEP 1/16″ 배관과 1/4-28 피팅과 사강, 전류를 뒤집으면 식는 펠티에, 양방향 TEC 제어기, PT-1000 과 MAX31865, 1.8 °C/s 를 만드는 열 경로, 자석과 스테퍼모터, 압력 발생기와 유량계, 300:900 µL/min 으로 도는 어긋난 헤링본 칩. 부품마다 실제로 살 수 있는 물건을 답니다.
- 1부 상자를 뜯어 개수를 센다 · 네 구역과 세 모듈 · 회로 셋에 전원 하나
- 2부 밸브 · 펌프 · 배관 — 젖는 것만 갈아 끼우는 핀치밸브가 RNase 에 강한 이유
- 3부 펠티에 한 장이 상자 크기를 정했다 · 양방향 전류 · PT-1000 은 왜 열전대가 아닌가
- 4부 자석은 90초면 된다 · 스테퍼가 움직이는 한 축 · 압력과 유량을 함께 재는 까닭
- 5부 【실습】 부품표 두 벌 — 싼 길과 실험실 등급 · 논문이 부품번호를 한 개도 안 적었다
 86
🧠 mRNA 백신 합성기 펌웨어
부품을 다 사도 상자는 가만히 있습니다 — 밸브에게 “열려라” 라고 말할 줄 아는 것이 없기 때문입니다. /mech 가 부품을 골랐다면, 이 강의는 라즈베리파이 한 대에 파이썬으로 펌웨어를 얹습니다 — 데비안은 실시간이 아니라는 것부터, 드라이버·장치·순서 세 층, 솔레노이드와 환류 다이오드, 연동펌프 일곱을 한 줄(RS485)에, 파이썬으로 스테퍼를 돌리면 안 되는 까닭, MAX31865 와 PT-1000, TEC 의 양방향 PID, 유량계의 CRC 검산, 3:1 을 지키는 폐루프, 터치스크린·키패드·경보음, 그리고 마스터 스케줄러 · 결함 검출 · 예외 처리까지. 모의 드라이버로 쓰므로 실물이 없어도 따라올 수 있습니다.
- 1부 데비안은 실시간이 아니다 · 드라이버·장치·순서 세 층 · 버스 넷(GPIO·SPI·I²C·RS485)
- 2부 GPIO 는 코일을 못 켠다 · 펌프 일곱을 한 줄에 · 스테퍼 펄스는 파이썬 밖으로
- 3부 MAX31865 와 PT-1000 · TEC 양방향 PID · ‘받침 먼저, 액체 나중’ 을 캐스케이드 제어로
- 4부 유량계의 CRC 검산 · 3:1 을 지키는 폐루프 · 터치스크린·키패드 · 경보에는 등급이 있다
- 5부 마스터 스케줄러 · 워치독과 페일세이프 · 예외와 감사 로그 · 고장부터 설계한다
 87
🗂️ mRNA백신 설계 첫걸음 I
백신 설계는 서열 하나를 받는 데서 시작합니다. 그 하나를 잘못 고르면 뒤의 다섯 권이 전부 헛것이 됩니다. 스파이크 단백질 P0DTC2(1273 아미노산)를 UniProt·NCBI·GenBank 세 문에서 받아 보고, 단백질 서열과 CDS (NC_045512.2 의 21563–25384)가 어떻게 다른지, 접근번호에 붙은 판번호가 재현성에 무엇을 하는지 봅니다. 표적을 아직 모를 때의 갈림길도 다룹니다 — 유전체를 통째로 훑고 Clustal Omega 로 보존영역을 찾고 Prokka 로 ORF 를 뽑는 길. 끝나면 믿을 만한 FASTA 한 장이 남습니다.
- 1부 표적 하나가 정하는 것 · 접근번호는 이름이 아니라 주소 · 세 문(UniProt·NCBI·GenBank) · FASTA 머리글
- 2부 왜 스파이크인가 · 단백질 서열과 CDS 는 다른 것 · 21563–25384 · 1부터 세는 좌표
- 3부 1273 × 3 + 3 은 3822 인데 논문은 3819 다 · 역번역은 왜 답이 여럿인가 · 판번호와 재현성
- 4부 표적을 모를 때 — 유전체 훑기 · Clustal Omega 보존영역 · Prokka 와 ORF · NCBI Virus 로 걸러내기
- 5부 전장 CDS 냐 MEVC 냐 · 16~32 코어와 2~3시간 · 함정 넷(종·이성질체·묵은 번호·단백질/염기 혼동)
 88
🔖 mRNA백신 설계 첫걸음 II
1273 글자짜리 맨 문자열에서는 아무것도 고를 수 없습니다. 먼저 주석을 답니다 — Pfam 으로 도메인을, MEME 으로 모티프를(5~10개, 너비 6~50), IEDB 로 에피토프를. 모티프 길이가 뜻을 나른다는 것을 배웁니다: 6~15 아미노산은 수용체 결합과 에피토프, 20~50 은 융합펩타이드와 헵타드 반복. MHC class I 은 9글자 · class II 는 15글자 · 사람 HLA 대립유전자 27개로 인구 97%. 그리고 이 권의 수확 — 29,620 · 5,671 · 1,266 · 10. 네 자리 숫자가 나왔다는 것이 근거가 생겼다는 뜻은 아닙니다.
- 1부 도메인 · 모티프 · 에피토프는 서로 다른 것 · Pfam 으로 맞춰 보기 · MEME 으로 찾아내기
- 2부 모티프 너비가 나르는 뜻 · 6~15 대 20~50 · “하나만” 과 “여럿” 이 묻는 다른 질문
- 3부 class I 은 CD8 · class II 는 CD4 · 9글자와 15글자 · 27개 대립유전자로 97%
- 4부 NetMHCpan 의 점수와 퍼센타일 · BepiPred 와 유연성 · ElliPro 와 6VXX 사슬 셋 · 돌출 지수
- 5부 수확 29,620 · 5,671 · 1,266 · 10 · 예측은 에피토프가 아니다 · UniProt GFF 라는 지름길
 89
🪢 mRNA백신 설계 첫걸음 III
이 권의 등뼈는 숫자 셋입니다 — 29,620 → 1,443 → 5. 퍼센타일 순위 1% 와 2%, IC₅₀ 50 nM 과 500 nM, 그리고 실제로 쓴 엄격한 컷오프 ≤1.6. VaxiJen(문턱 0.4)·ToxinPred·AllerTOP 세 체를 지나면 다섯 개가 남습니다. 항원성이 0.47 에서 1.70 으로 오르고, 집단 적용범위가 99.82%, PC90 이 3.39 가 됩니다. 그다음이 이 권의 이름입니다 — 보조제 HBD2 에 EAAAK 을 붙이고, HTL 을 GPGPG 로, CTL 을 AAY 로, B세포를 KK 로 매듭지어 309 아미노산 33.74 kDa 하나를 만듭니다.
- 1부 29,620 은 백신이 아니다 · 순위가 낮을수록 세다 · 1% 와 2% · IC₅₀ 50 과 500 nM
- 2부 컷오프 ≤1.6 이 남기는 1,443 과 99 · assay 수가 점수를 이긴다 · 세 체 VaxiJen·ToxinPred·AllerTOP
- 3부 항원성 0.47 대 1.70 · 독성 세 조각은 이미 빠져 있었다 · 적용범위 99.82% · 평균 히트 5.18 · PC90 3.39
- 4부 보조제 → EAAAK → HTL(GPGPG) → CTL(AAY) → B세포(KK) · 링커마다 다른 까닭 · 접합부 에피토프
- 5부 309 아미노산 33.74 kDa · 불안정성 26.94 · 반감기 >30시간 · GRAVY −0.146 · 점수는 반응이 아니다
 90
🎼 mRNA백신 설계 첫걸음 IV
같은 단백질을 여러 방식으로 적을 수 있습니다. 어떻게 적느냐가 얼마나 만들어지는지를 바꿉니다. 코돈 편향과 CAI, 그리고 LinearDesign 의 λ — λ=0 이면 구조 우선, 1~2 면 균형, 논문이 쓴 λ=3 은 번역 효율 쪽입니다. 결과는 CAI 0.81 · 0.83, GC 50.35% · 53.61%. 그리고 이 권이 가장 크게 못을 박는 것 — MFE −1231.20(3819 nt)과 −299.50(927 nt)을 나란히 견주면 안 됩니다. MFE 는 길이를 따라 커지니까요. 마지막으로 접근성 — 리보솜이 앉을 자리는 열려 있어야 합니다.
- 1부 한 단백질 여러 악보 · 코돈 편향과 숙주 맞추기 · CAI 가 1.0 이면 무슨 뜻인가
- 2부 머리핀과 고리가 리보솜을 막는다 · MFE 는 낮을수록 안정 · 분해와 번역의 맞바꿈
- 3부 MFE 는 길이를 따라 커진다 — −1231.20 과 −299.50 을 못 견주는 까닭 · 길이로 나눠 보기
- 4부 LinearDesign 과 λ 손잡이 · λ=3 · CAI 0.81·0.83 · GC 30~70% 창 · NovoPro 는 MFE 를 안 준다
- 5부 RNAfold·RNAeval·RNAplfold 세 물음 · 염기쌍 확률 0~1 색칠 · 마운틴 플롯 · PSIPRED 는 코일이 많다
 91
🧰 mRNA백신 설계 첫걸음 V
벤치에 손을 대기 전에 컴퓨터로 걸러 봅니다. pET-28a(+) 를 Addgene 에서 받아 SnapGene 으로 열고, BamHI(GGATCC)를 삽입체 5′ 에 XhoI(CTCGAG)을 3′ 에 붙여 방향성 클로닝을 합니다. 그런데 산수가 맞지 않습니다 — 벡터 5369 에 삽입체 939 를 더하면 6308 인데 논문은 6262 라고 적어요. 사라진 46 bp 를 끝까지 따라갑니다. 그다음 C-ImmSim 이 IgM 에서 IgG 로 넘어가는 곡선과 IFN-γ·IL-2 를 그려 줍니다. 그런데 이 권이 가장 힘주어 말하는 것은 이것입니다 — 대장균에서 단백질이 나오는 플라스미드는 mRNA 백신이 아니고, 시뮬레이터의 곡선은 면역 반응이 아닙니다.
- 1부 이른 거르개의 값어치 · pET-28a(+) 와 T7 프로모터 · 플라스미드 지도가 보여 주는 것
- 2부 BamHI 와 XhoI · 짝이 안 맞는 말단이 방향을 정한다 · 자가결합 막기 · 내부 자리가 없어야 한다
- 3부 5369 + 939 는 6262 가 아니다 · 사라진 46 bp · 927 nt 가 939 bp 가 되는 까닭 · XhoI(158) 과 BamHI(1091)
- 4부 이은 뒤 확인할 넷 — ORF 연속성·시작코돈·내부 종결코돈·전체 크기 · His-tag 와 카나마이신
- 5부 C-ImmSim 과 단회 접종 · IgM→IgG1·IgG2 · IFN-γ 와 IL-2 · 항원이 줄어드는 것이 신호 · 그리고 함정 둘
 92
🎀 mRNA백신 설계 첫걸음 VI
코딩 서열은 분자의 전부가 아닙니다. 5′ 캡 · 5′ UTR · CDS · 3′ UTR · poly(A) 꼬리 — 다섯 토막을 다 갖춰야 mRNA 입니다. 코자크 서열과 상류 AUG 라는 도둑, 짧은 5′ UTR 이 대개 나은 까닭, 그리고 검증된 사람 UTR 들 — 5′ TMSB10 에 3′ Apo A-II 가 가장 좋은 짝이었습니다. 조합 수는 그냥 곱셈입니다(5′ 개수 × 3′ 개수). 마지막은 화학입니다 — 우리딘을 m1Ψ 로 바꾸는 것. 이것만은 예측이 아니라 승인된 코로나 백신이 실제로 쓰는 것입니다. TLR7·RIG-I·MDA5 가 왜 내 mRNA 를 공격하고, 인터페론이 켜지면 항원이 오히려 줄어드는 역설까지 봅니다.
- 1부 다섯 토막이 갖춰져야 mRNA 다 · 5′ 캡이 하는 세 가지 · 코자크 서열
- 2부 짧은 5′ UTR 이 대개 낫다 · 상류 AUG 와 uORF 가 리딩프레임을 훔친다 · 3′ UTR 과 폴리아데닐화 신호
- 3부 검증된 UTR — TMSB10·Ces1d·β-글로빈 / APOA2·AP3B1 · 가장 좋은 짝 · 조합은 곱셈 · UTRdb
- 4부 TLR7·RIG-I·MDA5 가 내 mRNA 를 본다 · 인터페론 역설 — 켜지면 항원이 줄어든다
- 5부 우리딘 → m1Ψ·Ψ · m5C·m6A·s2U · GC 는 양쪽으로 벤다 · 전달체는 이 논문 밖 · 여섯 권의 마무리
 93
🦇 mRNA백신 디자인 첫걸음 I
2025년 3월, 박쥐에서 BtHKU5-CoV-2 가 나왔습니다. 사람 ACE2 를 쓴다는 것이 알려진 지 열세 달 만에 이 논문이 실렸고, 값은 하나도 실험으로 재지 않았습니다. 이 권은 그 첫 걸음 — 스파이크 한 단백질에서 에피토프 스무 개를 뽑아내는 깔때기를 문턱값까지 따라갑니다. NetCTL 0.75 · VaxiJen 0.4 · IC50 500 nM · ABCpred 0.51. 그리고 직접 세어 봅니다 — 에피토프 스무 개가 스파이크의 열한 자리에만 모여 있고, HTL 일곱 개 중 셋은 논문 자신의 기준으로 약한 결합이며, 사람 단백질체와 견주는 E-value 문턱은 9잔기짜리 펩타이드에서 아무도 걸러내지 못합니다.
- 1부 박쥐에서 나온 바이러스 · ACE2 를 쓴다는 말 · 표적을 스파이크로 정한다 · 여섯 균주 중 441
- 2부 에피토프란 무엇인가 · NetCTL 1.2 와 문턱 0.75 · VaxiJen 0.4 가 못 하는 일 · 독성·알레르기 거르기
- 3부 HTL 과 NetMHCIIpan · IC50 와 %Rank 는 다른 자다 · 일곱 중 셋은 약한 결합 · ABCpred 와 RBD
- 4부 보존성 6/6 · 사람 단백질체와 장내세균 79종 · 9잔기에서 E-value 문턱은 무용지물
- 5부 스무 개가 열한 자리뿐 · 적재량 257잔기 중 79잔기가 중복 · 깔때기 전체 재현 · 말할 수 없는 것
 94
🧊 mRNA백신 디자인 첫걸음 II
에피토프 스무 개를 한 줄로 잇는 일이 이 권입니다. AAY · GPGPG · KK · EAAAK 링커 넷이 각각 무슨 일을 하고, β-디펜신 II 41잔기를 왜 앞에 다는지 봅니다. 그리고 419잔기를 직접 짓습니다 — 블록부터 쌓아 분자량 44.37 kDa 과 등전점 9.56 이 논문 값과 맞아떨어지는 것을 확인합니다. 맞아떨어지기 때문에 다음 셋을 단정할 수 있습니다 — 419잔기 중 42잔기가 본문에 없고, 에피토프 하나는 Table 2 보다 한 잔기 짧으며, 범례가 TAT 라 부르는 C말단 열한 잔기에는 염기성 잔기가 하나도 없습니다. 뒤이어 3차 구조와 그 품질 지표를 읽습니다.
- 1부 한 줄로 잇는 순서가 결정이다 · 링커 넷 · 프로테아좀이 링커를 자른다는 말 · β-디펜신 II
- 2부 419잔기를 손으로 짓는다 · 44.37 kDa 검산 · 본문에 없는 42잔기 · 한 잔기 짧은 에피토프
- 3부 범례의 TAT 와 염기성 잔기 0개 · 링커가 에피토프 안에 들어 있을 때 (AAY·KK)
- 4부 ProtParam 여섯 수치 · 반감기 30시간은 아미노산 한 개를 본 값 · 등전점 9.56 · 용해도 문턱 0.45
- 5부 PSIPRED · Robetta 와 RoseTTAFold · MolProbity 2.006 · 라마찬드란 90.1% 는 좋은 값이 아니다 · ElliPro
 95
🔭 mRNA백신 디자인 첫걸음 III
설계가 끝난 뒤에 이 논문이 한 일곱 가지를 하나씩 뜯어, 무엇이 검증이고 무엇이 아닌지 가릅니다. TLR2·TLR4 도킹에서 수소결합 22개가 6개보다 낫다는 말이 왜 성립하지 않는지, HADDOCK 점수에 붙은 ±16.0 이 무엇을 뜻하는지. 적용범위 97.49% 안에 중앙아메리카 23.88% 가 들어 있다는 사실 — 소외열대질환 학술지에 실린 논문에서 이 두 숫자의 거리가 이 권의 한가운데입니다. 그리고 가장 큰 갈림길 — 이 설계는 mRNA 로 TLR7·8 을 켜려 하는데, 승인된 mRNA 백신은 모두 m1Ψ 로 그것을 끕니다. 논문에는 m1Ψ 도 5′ 캡도 한 번 나오지 않습니다.
- 1부 설계 뒤의 일곱 가지 · ClusPro 점수는 에너지가 아니다 · HADDOCK −152.8±1.2 와 −132.9±16.0
- 2부 수소결합 개수는 친화도가 아니다 · 군집이 흔들린다는 뜻 · iMODS 의 변형성과 공분산
- 3부 적용범위를 세는 법 · 평균이 감추는 것 · 중앙아메리카 23.88% · 소외열대질환 학술지라는 자리
- 4부 C-IMMSIM 1000걸음이 350일인 까닭 · 눈금 없는 그래프 · 여섯 대립유전자로 돌린 모의실험
- 5부 CAI 0.91 과 GC 61% · 앙상블 자유에너지는 MFE 가 아니다 · TLR3·7·8 도킹 · m1Ψ 가 없다 · pET-28a(+)